
22个家族性血管母细胞瘤组织WES测序体细胞分析发生机制:59%检出VHL二次打击,常见拷贝数改变、3p缺失,突变负荷较低或与其“良性”有关
2026-09-07 绘真医讯 绘真医讯 发表于上海
研究结果表明,VHL相关家族性血管母细胞瘤以VHL基因和染色体3扩展区域不稳定为特征,进一步强化了该位点在肿瘤起始中的核心作用。
摘要
Von Hippel-Lindau病(vHL)使患者易于发生肿瘤,主要包括透明细胞肾细胞癌和血管母细胞瘤。其根本原因是VHL基因胚系变异;一般认为,肿瘤发生还需要额外的体细胞“第二次打击”,其中最常见的是3p缺失。然而,vHL相关肿瘤发生的确切机制尚未完全阐明。研究家族性血管母细胞瘤的基因组特征,可能有助于揭示肿瘤发生的早期步骤,并促进疾病预测、标志物发现和治疗策略的改进。
研究者对来自7例患者、代表5个无关家系和4种不同致病性VHL基因型的22个家族性血管母细胞瘤进行了全外显子组测序。这些肿瘤的总体突变负荷较低,但常见染色体3或3p杂合性缺失,以及VHL区域单核苷酸变异。变异显著富集于与γ-氨基丁酸能和5-羟色胺能神经细胞类型相关的基因,以及调控细胞周期和神经发生的通路。这些结果提示,除VHL缺失外,神经元分化程序和细胞周期控制失调也可能在血管母细胞瘤发生中发挥重要作用。
1. 引言
常染色体显性遗传病Von Hippel-Lindau病(vHL,MIM #193300)患者终生面临多器官肿瘤发生风险,主要为肾细胞癌和中枢神经系统(CNS)血管母细胞瘤。无论散发还是vHL相关CNS血管母细胞瘤,其生长过程均具有不可预测的增长期与停滞期。
vHL最常由抑癌基因VHL的胚系变异引起。约20%的vHL患者为散发病例,通常携带新生VHL变异且无相关家族史。具有阳性家族史的患者仅发现一个肿瘤即可诊断vHL,而散发病例则要求至少存在两个肿瘤。散发病例的诊断具有挑战性,因为新生变异可造成疾病嵌合;患者可能具有疾病临床表现,但遗传筛查为阴性,因为该变异未必存在于全部外周血白细胞中。
vHL由VHL蛋白(pVHL)功能受损所致。pVHL在细胞氧感知通路中发挥关键作用,该领域的发现促成William G. Kaelin Jr.、Peter J. Ratcliffe和Gregg L. Semenza获得2019年诺贝尔生理学或医学奖。pVHL是泛素连接酶复合物的组成部分,该复合物以氧作为共底物,介导一组称为缺氧诱导因子(HIF)的转录因子经蛋白酶体降解。发生缺氧,或pVHL缺失、失活时,HIF得到稳定并激活缺氧应答。HIF可诱导多种靶基因,涉及血管生成、增殖、凋亡和代谢等过程。
VHL蛋白还参与可能与肿瘤形成相关的非HIF依赖性过程:pVHL可调节细胞外基质组成和微管形成,激活并稳定p53蛋白,并诱导神经细胞凋亡。
vHL具有较高发病率和死亡率,到60~75岁时外显率接近完全。尽管已建立基因型-表型关联,其临床病程仍存在差异。即使患者携带相同的致病性胚系变异,肿瘤负荷、肿瘤出现年龄及生长模式也可能不同。临床病程相对不可预测,使患者管理更复杂,并给患病家庭带来沉重心理负担。
vHL相关肿瘤发生机制复杂且尚未完全阐明。一般而言,易感靶组织中发生体细胞变异,使剩余野生型等位基因失活,导致功能性VHL蛋白完全丧失,进而形成肿瘤。VHL基因位于染色体3短臂3p25;肿瘤发生前的第二次打击通常可通过不同机制发生,包括启动子甲基化、点突变或小变异、3p缺失或整条染色体3缺失。其中最常见的第二次打击为3p缺失。
然而,尽管VHL两个拷贝均失活被认为是必要条件,仅凭这一事件可能不足以驱动血管母细胞瘤形成。双等位基因VHL失活可存在于易感组织的多个肿瘤前体灶中,但其中大多数永远不会发展为引起症状的实际肿瘤。因此,为深入理解vHL相关肿瘤发生机制,还需识别促进肿瘤起始和进展的其他因素。
作者假设,CNS血管母细胞瘤存在共同遗传改变,可在pVHL缺陷细胞中促进肿瘤形成。为探索vHL相关家族性血管母细胞瘤的发生机制,研究者分析了7例vHL患者经手术切除的22个CNS血管母细胞瘤的体细胞突变谱。
2. 材料与方法
2.1 患者
研究者通过丹麦国家vHL数据库筛选携带已报告致病性VHL胚系变异、且至少接受过两次经组织病理学确认的CNS血管母细胞瘤手术切除的患者,以尽可能获得同一患者的多个肿瘤组织。最初确定13例vHL患者,共报告48个经手术切除的CNS血管母细胞瘤。研究收集临床资料、肿瘤相关信息及病理科保存的肿瘤样本。
生物样本于2010~2015年间从病理科收集,手术时间为1981~2013年。研究者最终获得8例患者32个血管母细胞瘤的福尔马林固定石蜡包埋(FFPE)样本和临床资料,并收集这8例患者的EDTA抗凝血样本。石蜡样本用滑动式切片机和钢刀切成10 μm厚切片;病理科医生在光镜下检查各肿瘤的苏木精-伊红染色切片,确认血管母细胞瘤病理诊断。
采用Maxwell DNA FFPE isolation kit和Maxwell Blood DNA kit分别从FFPE样本和血液中提取基因组DNA,并使用Nanodrop检测DNA浓度。4个血管母细胞瘤样本因DNA产量低于90 μL中总量300 ng而被排除;测序后,3个样本因总体测序质量低被排除,另有3个样本因基因型与血液样本不匹配被排除。最终分析7例患者的22个肿瘤样本,并评估成功完成分析的肿瘤临床资料。
2.2 全外显子组测序与数据分析
为鉴定肿瘤体细胞变异,研究者对配对血液和FFPE样本进行WES。文库采用Roche NimbleGen SeqCap EZ MedExome Enrichment Kit制备,在Illumina NextSeq 550平台进行2×100 bp双端测序。
原始读段使用BWA-MEM v0.7.12处理并比对至人NCBI build 37参考序列。GATK v4.2.3.0用于去除重复、重新校准碱基质量并生成校准后的BAM文件。肿瘤-血液配对样本体细胞变异检出采用Mutect2、CaVEMan和Pindel三种工具,以尽可能全面捕获变异。Mutect2和CaVEMan用于检出体细胞及胚系SNV;经轻度修改的Pindel 2.0用于检出体细胞及胚系小插入/缺失。
原始数据使用FastQC进行质量检查;数据处理后,采用Qualimap和Picard CollectMultipleMetrics检查比对质量,并获得GC含量、插入片段长度、覆盖度、已比对碱基比例、总体错误率和重复率等信息。
FFPE组织DNA常发生片段化和碱基改变,易产生测序伪影,且这些伪影通常表现出向某一方向偏倚。因此,研究者使用SOBDetector处理变异检出文件,检测FFPE样本的链方向偏倚。随后人工检查全部变异的BAM读段,并进行跨患者核对;若某个体细胞变异在多例患者样本中均被检出,则将其视为FFPE伪影并予以剔除。
变异注释和筛选使用VarSeq v2.2.4。仅纳入高质量、高置信度变异:覆盖读段至少25条,读段VAF大于0.1(10%);可接受的SOB评分≤0.8,且变异检出软件的质量标记必须为通过。位于多重比对区、短串联重复区或同聚物区的变异均被排除;BAM文件中背景噪声高且平均质量低于20的区域也被排除。为专门检出VHL基因体细胞变异,人工筛查所有BAM文件中的完整VHL基因区域。功能层面仅纳入影响蛋白序列或明确影响剪接位点的变异。
CADD 1.4用于预测功能有害性,PHRED标化评分≥20代表该变异预计属于有害性最高的1%替换。dbNSFP作为另一种有害性评分方法,整合SIFT、PolyPhen、MutationTaster、MutationAssessor、FATHMM Pred和FATHMM MKL六种算法。人群等位基因频率使用GnomAD 4.2外显子组和基因组数据库。
2.3 基因集过度代表分析
研究使用携带体细胞变异的基因列表和Human MSigDB v2024.1.Hs,检测GO术语及细胞类型特征基因集富集。细胞类型特征基因集基于特定细胞类型的基因表达数据。P值按超几何分布计算,并使用假发现率(FDR)校正多重比较。GO富集结果使用Cytoscape 3.10.2及ClueGO v2.5.10插件解释和可视化;采用P<0.05的节点,仅显示节点簇。ClueGO以功能分组网络形式展示非冗余生物学术语簇。
2.4 结构变异分析
研究者采用ASCAT算法并以配对血液样本作为参考,检出体细胞CNV。ASCAT估计全部SNP位点的等位基因拷贝数,同时校正肿瘤倍性和非异常细胞混合比例,生成涵盖增益、缺失、杂合性缺失(LOH)及其他拷贝数中性事件的全基因组拷贝数谱。Delly2用于检出易位、倒位、串联重复或缺失等复杂基因组重排,并采用体细胞检出和配对肿瘤对照样本分析。不同样本间CNV可能重叠的情况使用Bedtools overlap核查。
3. 结果
研究者分析vHL患者血管母细胞瘤中的体细胞遗传改变,以阐明肿瘤形成的分子机制。纳入患者均携带已知导致蛋白功能丧失的VHL胚系变异。研究共对7例患者的22个CNS血管母细胞瘤进行WES,代表5个无关家系和4种致病基因型;这些肿瘤在32年间(1981~2013年)完成切除。
队列包括3例女性和4例男性;首次发生vHL肿瘤时的中位年龄为21岁,范围11~35岁。22个肿瘤包括17个小脑肿瘤、3个脊髓肿瘤和2个脑干肿瘤。切除时多数肿瘤(17/22)伴有囊肿。从诊断到切除的中位时间为23个月,范围0~128个月。16个肿瘤有影像学资料:6个持续生长,3个大小稳定,7个呈间歇性生长模式,即无生长期后出现快速生长,通常发生于症状出现和手术前。
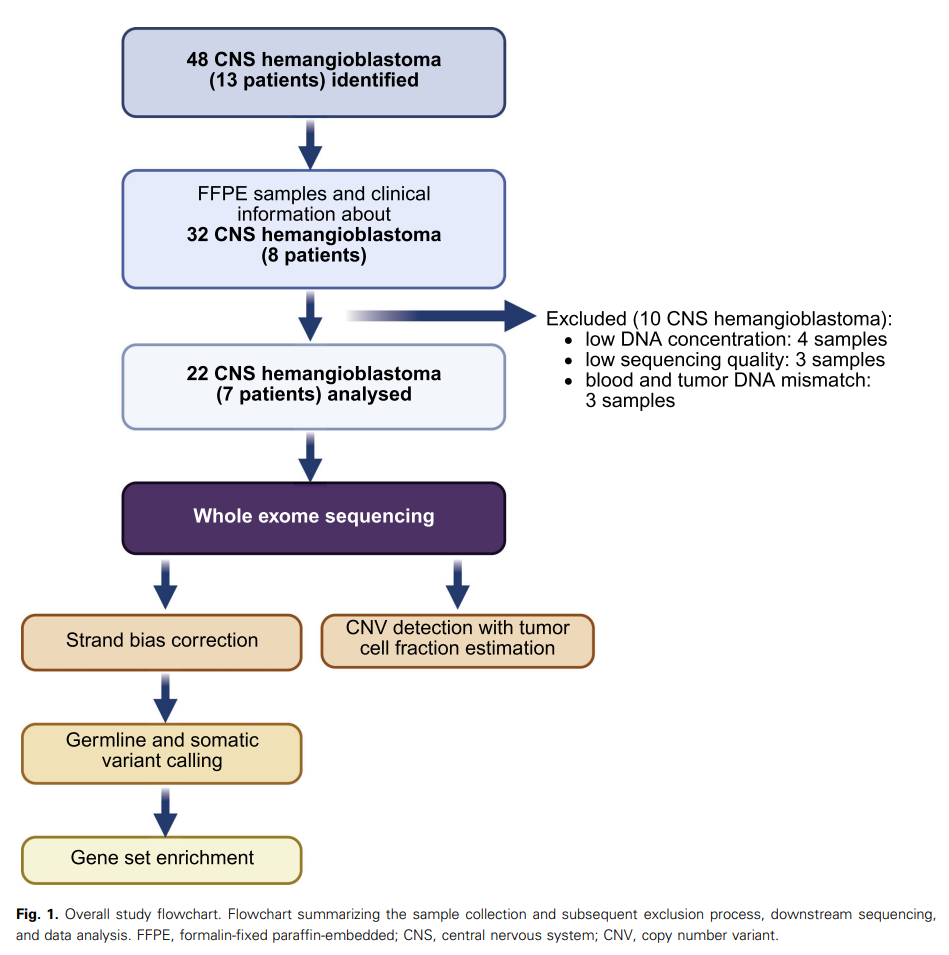
图1. 研究总体流程图。概述样本收集及后续排除过程、下游测序和数据分析。FFPE,福尔马林固定石蜡包埋;CNS,中枢神经系统;CNV,拷贝数变异。
3.1 vHL患者血管母细胞瘤的突变谱
每例患者成功分析1~6个肿瘤。超过一半的血管母细胞瘤检出VHL第二次打击变异,占59%(13/22);这13个肿瘤全部携带预计可导致VHL双等位基因失活的体细胞变异。其中8个样本存在VHL拷贝数改变,7个样本存在小插入/缺失或错义变异,2个样本同时存在CNV和插入/缺失变异。全部VHL插入/缺失均导致移码并形成下游终止密码子,严重改变蛋白结构和功能。
仅有两个VHL体细胞变异为错义变异:外显子1的c.234T>G、p.Asn78Lys,以及外显子3的c.488T>G、p.Leu163Arg。二者均被预测为有害,位于突变热点,在GnomAD 4.2中均未收录。p.Leu163Arg既往曾作为胚系变异在一个嗜铬细胞瘤家系中报道,而p.Asn78Lys此前未见报道。
患者05的CNS2肿瘤中,VHL体细胞变异c.477_478insCA位于胚系变异c.481C>T、p.Arg161Ter附近。测序覆盖度及两个变异的位置确认了第二次打击,导致肿瘤中VHL完全失活。根据携带野生型和体细胞变异的读段比例,估计肿瘤细胞比例为14.5%。
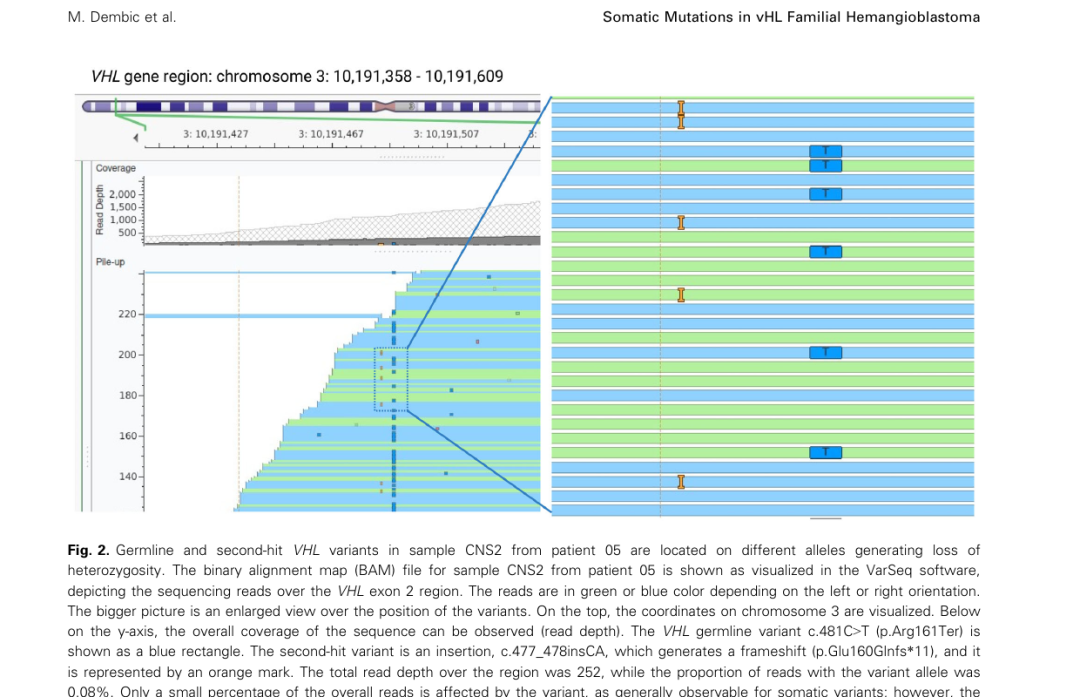
图2. 患者05的CNS2样本中,VHL胚系变异与第二次打击变异位于不同等位基因,导致杂合性缺失。图示VarSeq中的BAM文件及VHL外显子2区域测序读段;绿色和蓝色分别代表左右方向读段,放大图显示变异位置。顶部为染色体3坐标,纵轴为覆盖深度。VHL胚系变异c.481C>T(p.Arg161Ter)以蓝色矩形表示;第二次打击为插入变异c.477_478insCA,造成移码p.Glu160Glnfs*11,以橙色标记表示。该区域总读深为252,变异等位基因读段比例为0.08%。两个变异从未出现在同一读段上,直观显示VHL双等位基因失活。
vHL相关CNS血管母细胞瘤的总体体细胞突变负荷相对较低。22个样本中共检出170个独特体细胞变异,影响162个基因。Mutect2与CaVEMan对36个变异的判断一致,Mutect2检出的变异多于CaVEMan;Pindel未检出插入/缺失变异。因此研究合并使用Mutect2和CaVEMan数据,并通过人工观察BAM文件验证全部变异。
每个肿瘤平均检出7.7个体细胞SNV和插入/缺失,范围0~25个。VHL是最常发生突变的基因;除VHL外,仅NIN和TTN在超过一个样本中出现体细胞变异。两个肿瘤样本未检出体细胞变异,分别来自两例无关患者,二者均携带VHL胚系外显子2缺失。未检出变异可能反映肿瘤细胞比例低等技术局限。
相比之下,携带外显子2缺失并伴其他体细胞VHL变异的样本往往具有更高突变负荷。值得注意的是,全部携带胚系外显子2缺失及多个体细胞变异的肿瘤(N=6),均在初诊后很短时间内切除:2天至18个月,中位2周,提示其生长可能更具侵袭性。
携带p.Arg161Ter胚系变异的肿瘤体细胞变异较少、突变负荷最低。体细胞改变最多的是患者04的CNS2肿瘤,该肿瘤携带VHL胚系变异p.Gln145Ter及体细胞VHL变异c.234T>G、p.Asn78Lys,并另有25个变异。该肿瘤在手术前不久形成相关囊肿,囊肿包含多个囊腔和多个实性成分。
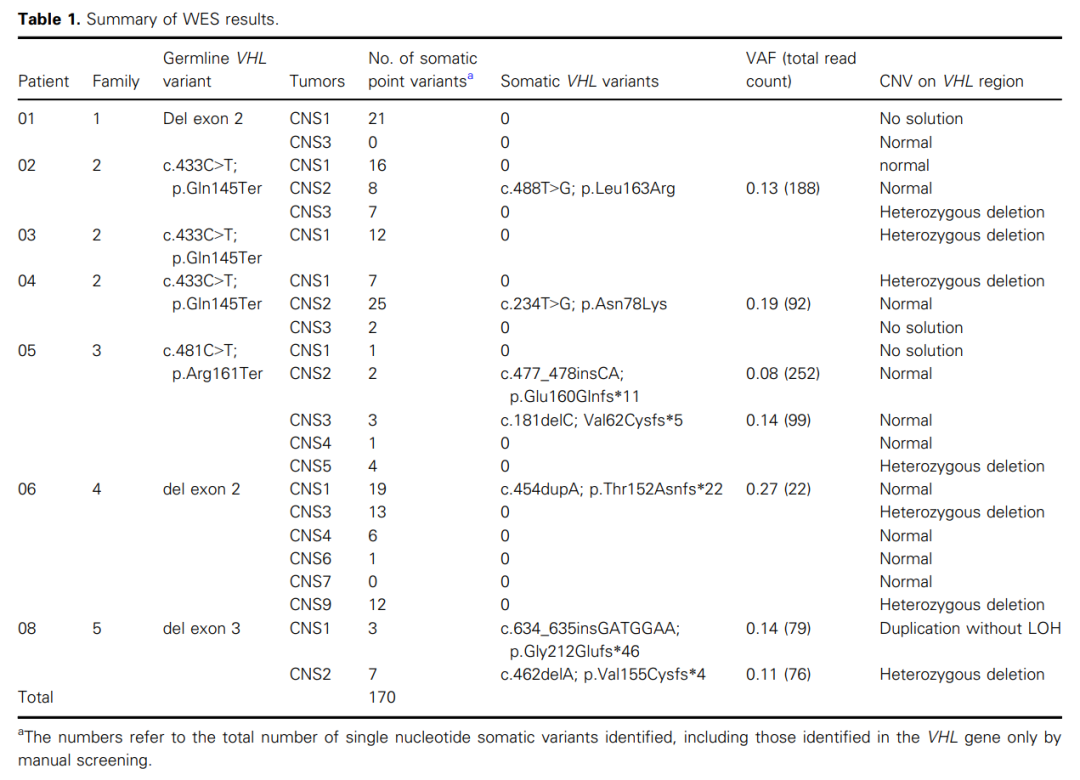
表1. WES结果汇总。数字为检出的体细胞单核苷酸变异总数,包括仅通过人工筛查VHL基因发现的变异。
3.2 基因本体分析
研究使用Human MSigDB对全部携带体细胞变异的基因进行基因集富集分析。生物学过程、分子功能和细胞组分三个GO类别中共发现80个显著富集的基因集。为便于解释,研究使用ClueGO按相似性对基因集分组。
最大基因集组与DNA复制调控和后脑发育相关。血管内皮细胞迁移调控、组蛋白结合和染色质组装也是最具代表性的基因集,提示参与这些过程的基因在血管母细胞瘤中常受体细胞改变影响。对富集最显著的10个GO术语及携带体细胞突变的基因进行分析,结果与ClueGO一致;前10项主要与CNS发育和细胞周期相关。VHL未包含在这10个最显著富集的基因集中。
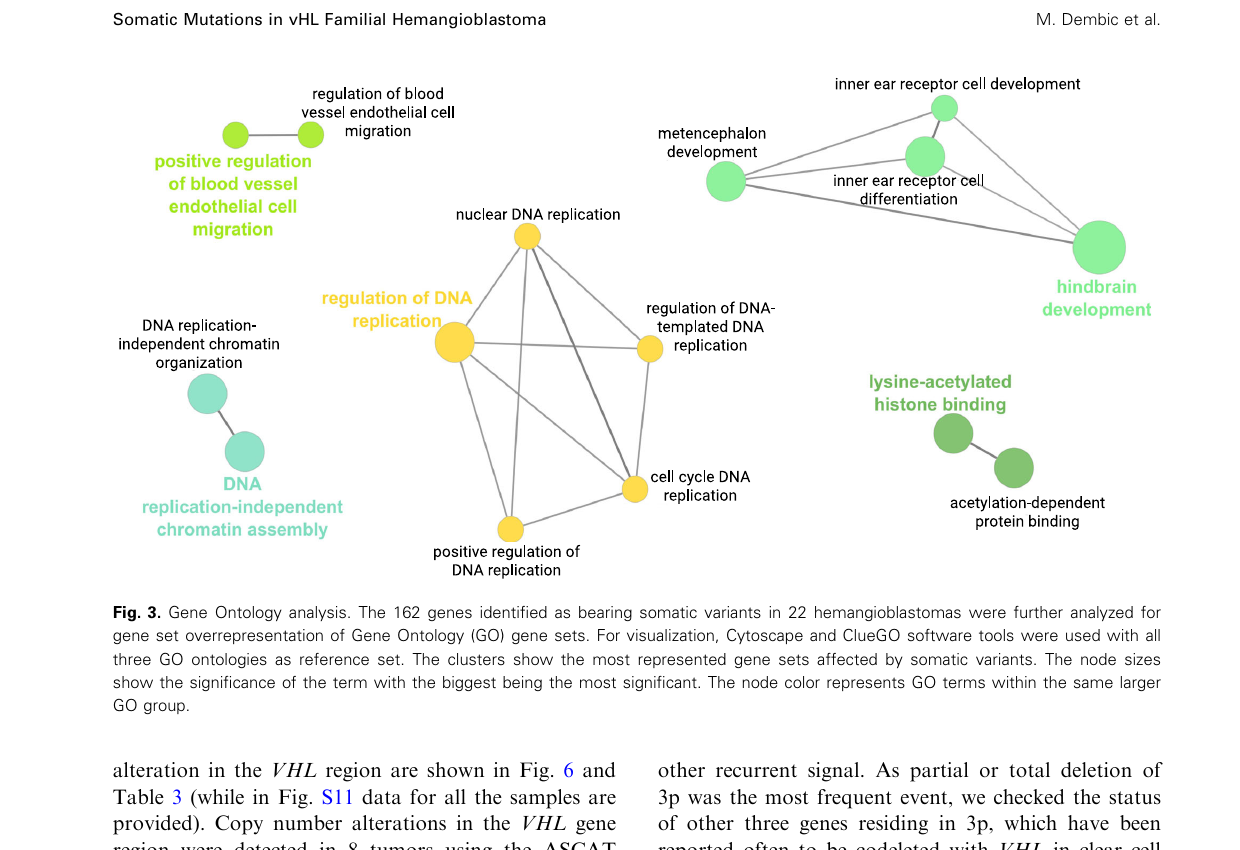
图3. 基因本体分析。对22个血管母细胞瘤中检出的162个携带体细胞变异的基因进行GO基因集过度代表分析。可视化采用Cytoscape和ClueGO,并以全部三个GO本体作为参考集。各簇显示最具代表性的、受体细胞变异影响的基因集;节点越大代表显著性越高,节点颜色代表同一较大GO分组中的术语。
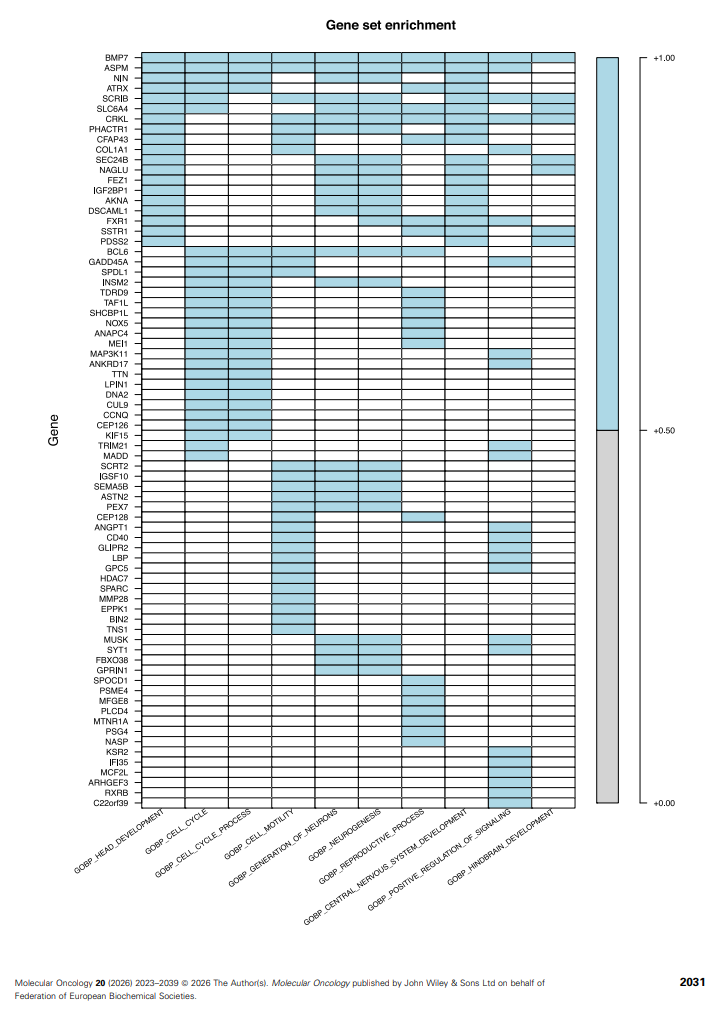
图4. CNS血管母细胞瘤体细胞变异的GO过度代表分析。将22个血管母细胞瘤体细胞变异分析得到的162个基因,使用Human MSigDB检测过度代表基因集。矩阵横向列出GO数据库中显著性最高的10个基因集,纵向列出基因名称;Benjamini-Hochberg校正后的FDR或P值≤1.32×10⁻⁴。完整通路列表见表S5。GOBP,GO生物学过程。
3.3 细胞类型特征分析
研究者分析携带体细胞变异的基因列表,以确定特定细胞类型特异性基因是否过度代表。富集最显著的10个基因集中,许多具有神经元细胞特征。研究特别识别出人胚胎中脑神经元细胞,包括GABA能神经元、5-羟色胺能神经元、中外侧神经母细胞,以及外侧底板神经祖细胞。
VHL包含在界定GABA能神经元类型的基因集中,可能造成内在偏倚。因此,研究者从基因列表中移除VHL后重复分析,细胞类型类别仅发生轻微改变。两份结果列表均见表S6。
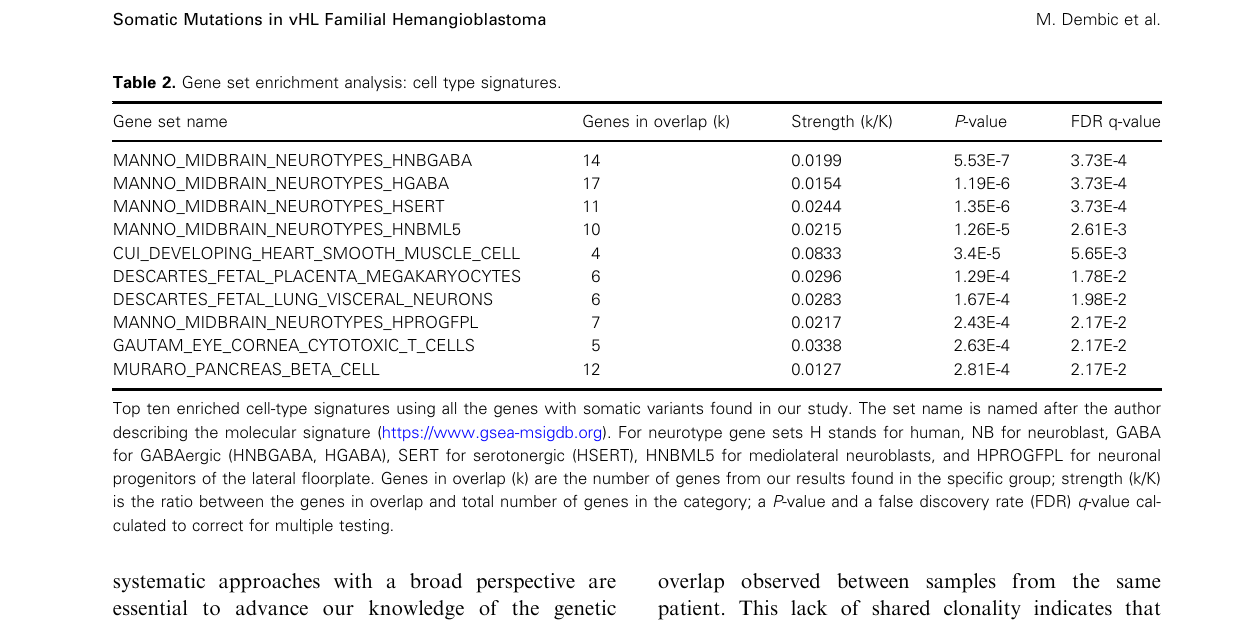
表2. 基因集富集分析:细胞类型特征。列出使用本研究全部体细胞变异基因得到的前10个富集细胞类型特征。重叠基因数k为本研究结果中落入特定类别的基因数;强度k/K为重叠基因数与该类别总基因数之比;P值及FDR q值用于多重检验校正。
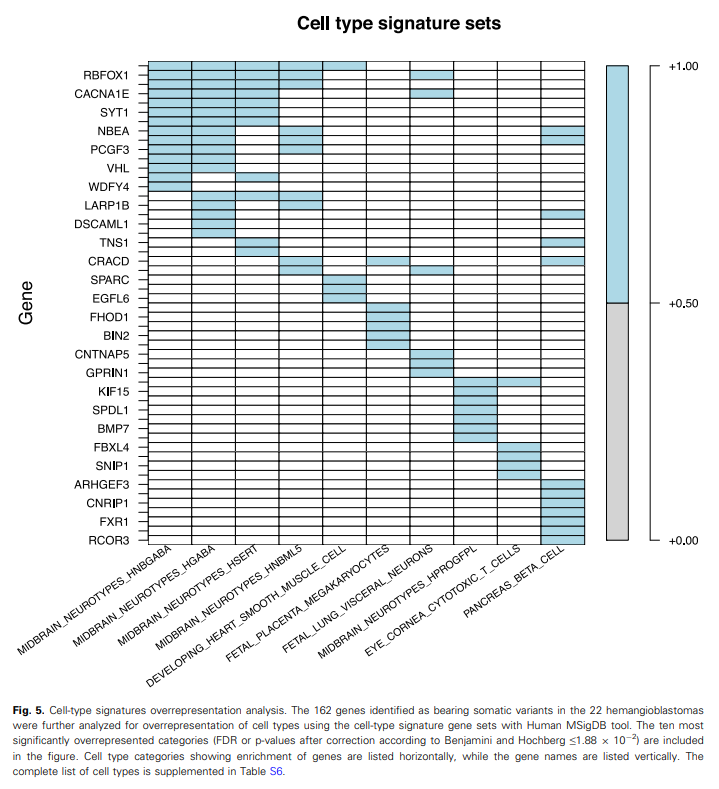
图5. 细胞类型特征过度代表分析。采用Human MSigDB细胞类型特征基因集,对22个血管母细胞瘤中携带体细胞变异的162个基因进行细胞类型过度代表分析。图中列出显著性最高的10个类别,Benjamini-Hochberg校正后的FDR或P值≤1.88×10⁻²;横向为富集细胞类型类别,纵向为基因名称。完整细胞类型列表见表S6。
3.4 拷贝数分析
除SNV和小插入/缺失外,研究还开展了拷贝数和染色体重排分析。包含VHL基因区域的CNV是最常见事件。ASCAT在8个肿瘤中检出VHL区域拷贝数改变;其中7/8存在涵盖VHL的染色体区域LOH,另1例为重复事件,但因未伴LOH而被认为在功能上中性。
等位基因缺失可涉及3p的较短区域(05-CNS5和08-CNS2)、较长区域(04-CNS1和06-CNS9),另有3个肿瘤丢失整条染色体3(02-CNS3、03-CNS1和06-CNS3)。3个样本因无法确定肿瘤比例或无法计算等位基因频率而分析不确定或无结果,通常源于肿瘤含量不足或测序深度不足。
在寻找多个样本共同存在的其他拷贝数改变时,未发现其他复发性信号。由于3p部分或全部缺失最常见,研究者进一步检查了3p上的PBRM1、BAP1和SETD2;在透明细胞肾细胞癌中,这些基因常与VHL共同缺失。本研究中,这三个基因也经常缺失或与VHL共同缺失。两个样本(02-CNS1和06-CNS4)无VHL体细胞改变,但存在SETD2一个等位基因缺失;06-CNS9同时存在VHL和SETD2 LOH,但BAP1和PBRM1未发生LOH。
样本中未检出倒位、插入、融合或串联重复等复杂染色体重排。
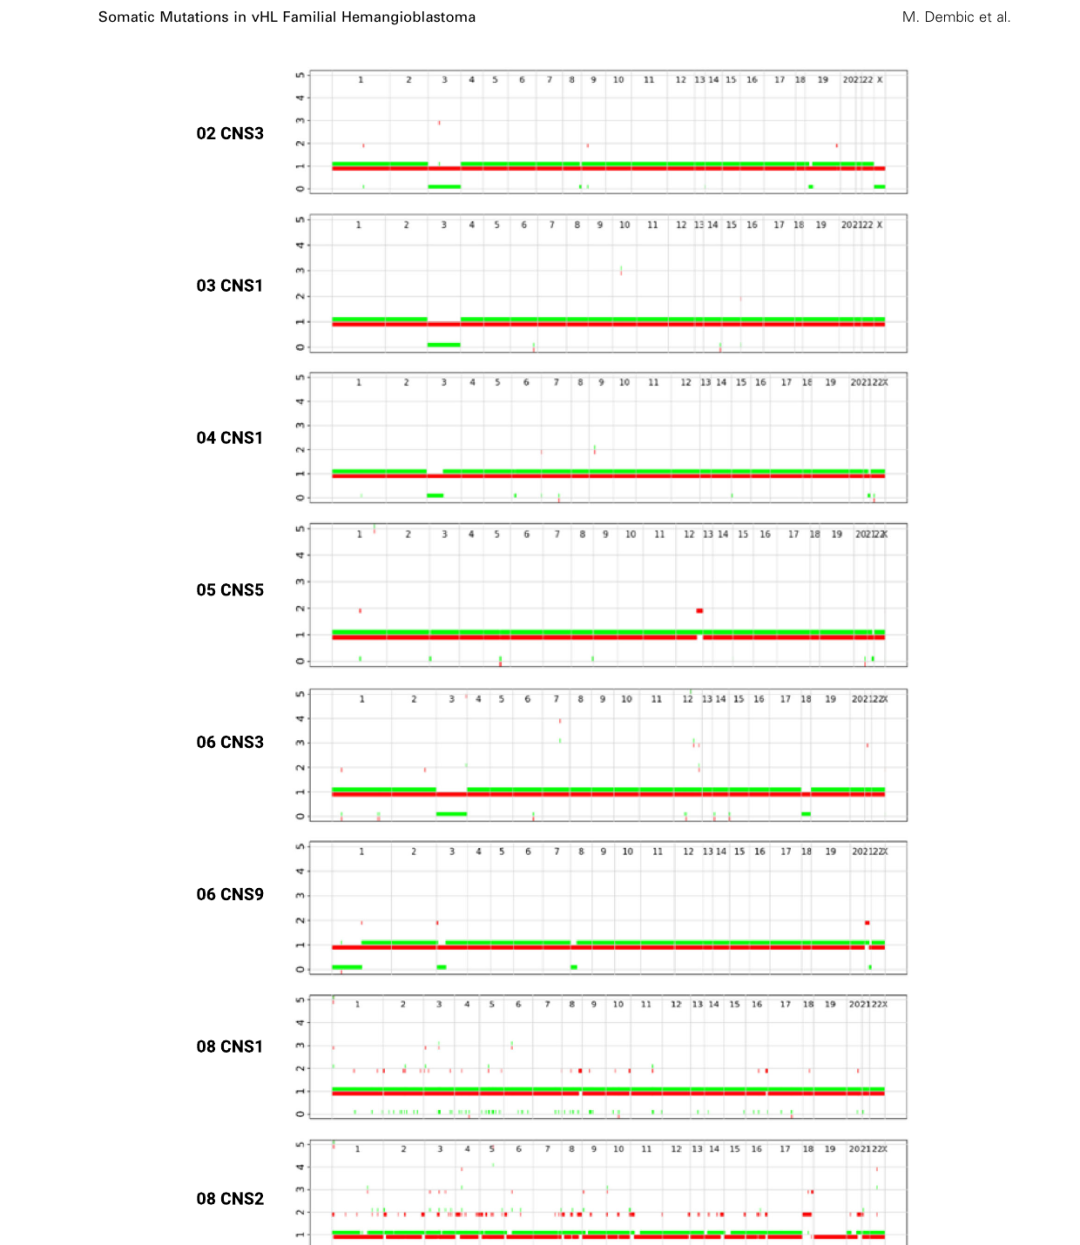
图6. VHL区域发生拷贝数改变的样本ASCAT谱。对22个肿瘤计算全基因组肿瘤等位基因特异性拷贝数分析谱,图示在染色体3的VHL区域检出等位基因缺失或其他事件的样本。ASCAT综合假定异常细胞比例和肿瘤倍性,计算肿瘤基因组谱;纵轴为所有位点的计算拷贝数,横轴为各条染色体。绿色始终表示拷贝数较低的等位基因,红色表示拷贝数较高的等位基因。
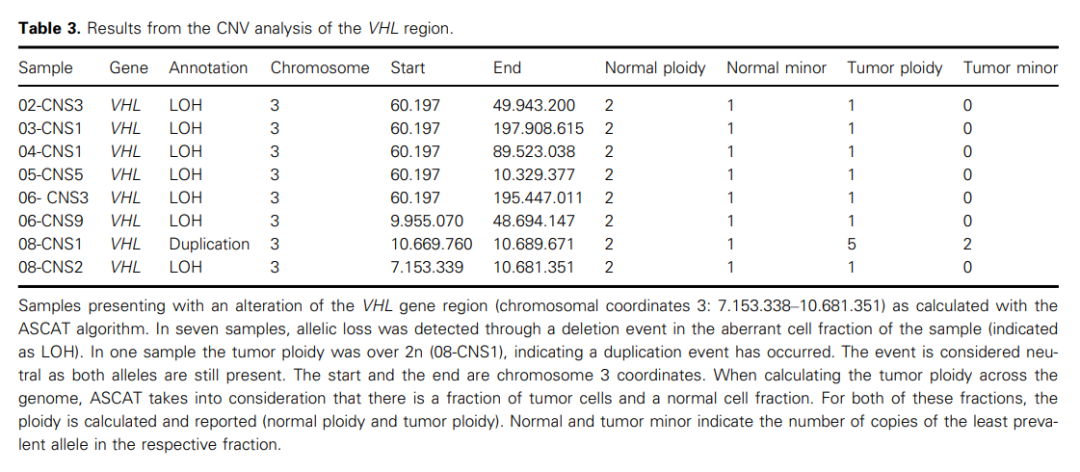
表3. VHL区域CNV分析结果。列出ASCAT算法计算得到的VHL基因区域改变。7个样本通过异常细胞比例中的缺失事件检出等位基因缺失(LOH);08-CNS1肿瘤倍性大于2n,提示发生重复,但两个等位基因仍存在,因此被认为是中性事件。起止位置为染色体3坐标。
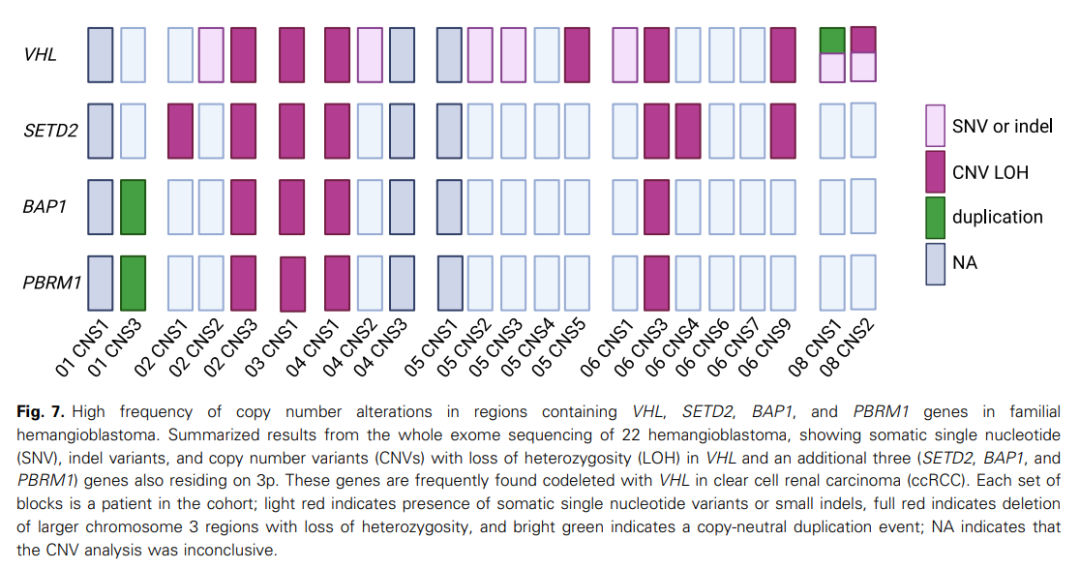
图7. 家族性血管母细胞瘤中包含VHL、SETD2、BAP1和PBRM1的区域具有较高拷贝数改变频率。汇总22个血管母细胞瘤WES结果,展示VHL以及同位于3p的SETD2、BAP1和PBRM1中的体细胞SNV、插入/缺失及伴LOH的CNV。这些基因在透明细胞肾细胞癌中常与VHL共同缺失。每组方块代表队列中的一例患者;浅红色表示存在体细胞SNV或小插入/缺失,深红色表示伴LOH的较大染色体3区域缺失,亮绿色表示拷贝数中性重复,NA表示CNV分析无明确结论。
4. 讨论
vHL肿瘤发生机制仍未完全阐明,需要采用具有广泛视角的系统性方法,才能推进对早期前体向完全形成肿瘤发展的遗传事件的认识。截至目前,本研究是规模最大的家族性血管母细胞瘤WES研究,在外显子组层面对SNV、插入/缺失、CNV和大尺度染色体重排进行了全面分析。
研究发现总体突变负荷较低,但VHL失活非常常见:超过一半的肿瘤检出失活性第二次打击变异。VHL最常受到体细胞拷贝数改变影响,占36%(8/22);小插入/缺失和SNV略少,占32%(7/22)。仅两个肿瘤存在VHL体细胞错义变异。文中讨论处将既往报道的变异记为p.Asn163Lys,而结果部分和表格对应为p.Leu163Arg;p.Asn78Lys此前未见vHL相关报道,但第78位蛋白残基的其他变异已有报道,提示该位置可能对蛋白功能十分重要。p.Asn78Lys体细胞变异见于携带p.Gln145Ter胚系变异的样本,该肿瘤体细胞变异最多,共25个。
血管母细胞瘤外显子组缺少其他肿瘤常见的大量改变,可能与其“良性”分类有关。仅少数样本具有较复杂基因组谱,可能反映多个共定位肿瘤被一并切除。每个肿瘤均携带不同的体细胞变异集合,即使来自同一患者的样本之间也无重叠。这种缺乏共享克隆性的现象提示,各病灶独立起源,而非来自共同祖先克隆;结果支持血管母细胞瘤始终为原发肿瘤。
162个发生体细胞变异的基因显著富集于DNA复制、后脑发育、血管细胞迁移和组蛋白结合相关基因集,提示这些基因集中的体细胞变异可能促进CNS血管母细胞瘤形成。
研究还发现,已知在GABA能和5-羟色胺能神经元中表达的基因,其体细胞变异呈过度代表;许多富集细胞类型属于神经母细胞和神经祖细胞。这提示具有未分化神经元转录程序的细胞可能尤其容易形成血管母细胞瘤。这与既往报道相符:血管母细胞瘤中的肿瘤性“间质”细胞可表达通常与胚胎祖细胞相关的标志物。这些观察支持血管母细胞瘤可能起源于分化能力受损的祖细胞群,为其独特生物学和解剖分布提供可能的细胞学解释。
但本研究未直接测量基因表达,只分析了携带体细胞变异的基因列表是否富集,因此未来需在体细胞变异检测同时开展基因表达检测,以验证上述发现。
总体而言,VHL位点存在复发性体细胞改变,包括SNV、小插入/缺失、VHL位点半合子缺失、3p或整条染色体3缺失,以及染色体3重复,与散发性血管母细胞瘤既往研究一致。vHL中染色体3缺失范围差异很大,但既往报道其与胚系变异、受累器官或肿瘤类型和行为无相关性。
虽然本研究中VHL LOH常见,但并非所有肿瘤均检出VHL第二次打击。这可能反映肿瘤含量低、样本类型等技术局限,也提示可能有其他基因参与。既往研究认为,单独VHL失活不足以形成vHL相关肿瘤,并探索了HNF1B和PLAGL1/ZAC1等遗传靶点。本研究未在这些既往报道基因中发现拷贝数或SNV,也未发现其他基因的复发性变异,但检出KDM5C体细胞变异c.4159C>T;KDM5C是透明细胞肾细胞癌中3p以外最常发生突变的基因。
在透明细胞肾细胞癌中,VHL常与位于3p的PBRM1、BAP1和SETD2一个或多个抑癌基因发生共同缺失和SNV。本研究虽未在这些基因中发现体细胞SNV,却经常观察到累及一个或多个基因的等位基因缺失。尤其有两个样本发生包括SETD2但不包括VHL的杂合缺失。这提示这些基因除在透明细胞肾细胞癌中发挥已知作用外,也可能参与血管母细胞瘤发生,为进一步研究提供依据。
4.1 优势、局限性及未来展望
本研究的主要优势在于,对截至目前报道规模最大的家族性血管母细胞瘤样本集开展WES,并纳入临床特征和肿瘤生长模式;多数情况下成功收集并分析每例患者的多个肿瘤。此类分析具有挑战性,部分原因是样本收集耗时较长且使用FFPE组织。
在FFPE样本中成功检出体细胞变异是一项成果,但同时也是局限,因为FFPE核酸常发生片段化且容易产生伪影。为此,研究采用外显子组测序获得较高测序深度,并使用链偏倚检测器等生物信息学工具区分真实变异与FFPE特异性假阳性;后者通常呈链偏倚。研究还将最低VAF阈值设为0.1,低于该值时,作者认为假阳性风险超过灵敏度提升带来的潜在收益。最后,研究者人工检查BAM读段,并对不同患者样本进行交叉核对。高深度测序、生物信息学质控和人工质控相结合,使研究者能够较有把握地区分FFPE样本中的真实变异和伪影。
其他局限包括商业外显子组试剂盒的基因覆盖不完整,例如既往报道的HNF1B未被纳入。最后,尽管这是迄今规模最大的家族性血管母细胞瘤全基因组范围研究,总样本数仍然有限,使表型-基因型关联分析十分困难。本研究证明对vHL血管母细胞瘤FFPE样本开展体细胞变异分析具有可行性,但未来仍需扩大样本量,以可靠评估临床表型关联。
5. 结论
研究结果表明,VHL相关家族性血管母细胞瘤以VHL基因和染色体3扩展区域不稳定为特征,进一步强化了该位点在肿瘤起始中的核心作用。尽管总体体细胞突变负荷较低,但细胞周期调控和神经发生相关基因改变显著富集,提示选择压力作用于特定细胞类型——GABA能和5-羟色胺能神经细胞——中对增殖及神经元分化至关重要的通路。
这些结果支持如下模型:VHL缺失为肿瘤形成建立允许性背景,而特定发育和细胞周期相关基因的继发突变则促进肿瘤进展。
文献来源:Dembic M, Nørremølle A, Ousager LB, et al. Somatic mutational landscape in von Hippel-Lindau familial hemangioblastoma. Molecular Oncology. 2026;20:2023-2039. https://doi.org/10.1002/1878-0261.70228.
 分享
本网站所有内容来源注明为“梅斯医学”或“MedSci原创”的文字、图片和音视频资料,版权均属于梅斯医学所有。非经授权,任何媒体、网站或个人不得转载,授权转载时须注明来源为“梅斯医学”。其它来源的文章系转载文章,或“梅斯号”自媒体发布的文章,仅系出于传递更多信息之目的,本站仅负责审核内容合规,其内容不代表本站立场,本站不负责内容的准确性和版权。如果存在侵权、或不希望被转载的媒体或个人可与我们联系,我们将立即进行删除处理。
在此留言


#家族性血管母细胞瘤# #VHL#
21 举报