【论肿道麻】表观转录组对癌症特征的调控:RNA修饰的功能、机制与治疗学
2026-02-20 古麻今醉网 古麻今醉网 发表于陕西省
该文提供了一个将RNA修饰及其调控因子与癌症特征联系起来的机制框架。并重点介绍了表观转录组调控因子与经典癌症通路之间相互作用的新见解,探讨其作为生物标志物和治疗靶点的转化潜力。
表观转录组包含超过170种不同的RNA修饰,构成基因调控的动态层级。N⁶-甲基腺苷(m⁶A)、5-甲基胞嘧啶(m⁵C)、假尿苷(Ψ)等修饰通过调控RNA加工、定位、稳定性和翻译,影响细胞身份和应激反应。在癌症中,RNA修饰与致癌信号网络整合,影响癌细胞的增殖、代谢、免疫逃逸、干细胞特性和治疗耐药性。 2026年1月,《Cancer Cell》 上发表了一篇名为《Epitranscriptomic control of cancer hallmarks: Functions, mechanisms, and therapeutics of RNA modifications》的综述,该文提供了一个将RNA修饰及其调控因子与癌症特征联系起来的机制框架。并重点介绍了表观转录组调控因子与经典癌症通路之间相互作用的新见解,探讨其作为生物标志物和治疗靶点的转化潜力。
1.引言
RNA如今已被公认为细胞调控的核心驱动因素,尤其在癌症领域,RNA介导的进程参与了肿瘤的发生、发展及治疗反应。RNA表观转录组通过可逆化学修饰调控RNA代谢,类似于表观基因组中的DNA和组蛋白修饰。目前已在编码与非编码RNA中鉴定出超过170种修饰,涵盖信使RNA(mRNA)、转移RNA(tRNA)、核糖体RNA(rRNA)、长链非编码RNA(lncRNA)、环状RNA(circRNA)及染色质相关RNA(caRNA)。研究最深入的包括m⁶A、m⁵C、Ψ、m¹A和A-to-I编辑,以及Nm、m⁷G和ac⁴C等。这些标记由"写入器"(writers,如甲基转移酶)、"擦除器"(erasers,如去甲基化酶)和"阅读器"(readers,如结合蛋白)动态调控,以环境特异性方式塑造RNA剪接、定位、稳定性和翻译。在分子层面,它们影响RNA命运的几乎每个阶段;在系统层面,它们与调控癌细胞增殖、代谢、免疫逃逸、干细胞特性及治疗耐药性的核心信号通路相互作用,这种多层级的协调作用使RNA修饰成为肿瘤可塑性全系统调控的关键因子。
表观转录组学的快速发展带来了新的转化应用机遇,mRNA疫苗、反义寡核苷酸及RNA干扰疗法已应用于临床。与此同时,RNA修饰酶正逐渐成为致癌、免疫逃逸及耐药通路中可靶向的节点。针对m⁶A或m⁵C修饰机制的小分子抑制剂已进入临床前研发阶段,修饰mRNA技术也整合了表观转录组学特征以增强其稳定性与翻译效率,这些进展凸显了RNA修饰在癌症生物学中的关键机制作用及其作为治疗前沿领域的巨大潜力。
2.RNA修饰酶主要表观转录组学标记及其调控复合体
m⁶A:真核生物mRNA中最丰富的内部修饰,由METTL3-METTL14-WTAP甲基转移酶复合物催化,METTL3提供催化活性,METTL14增强底物识别,WTAP等辅助亚基调控复合物定位及底物特异性 (图1)。m⁶A的去除由FTO和ALKBH5两种"擦除器"介导。FTO可广泛作用于m⁶A、m⁶Am及m¹A等多种甲基化腺苷,而ALKBH5则特异性催化m⁶A去甲基化。阅读器包括YTH家族(YTHDF1-3、YTHDC1/2,影响剪接、输出、翻译和稳定性)、IGF2BP家族(稳定mRNA并调控翻译)及hnRNPs(通过m⁶A开关机制结合)。此外,G3BP1/2作为"反读取器"优先结合未甲基化位点,提示修饰缺失本身亦具调控功能。RNA结构屏蔽或其他RBP竞争亦可抑制特定位点的甲基化。
m⁵C:m⁵C是一种首先在DNA中发现的保守化学修饰,随后也在tRNA、rRNA、mRNA及lncRNA中被发现。尽管丰度低于m⁶A,m⁵C仍占mRNA中全部胞嘧啶残基的0.02%–0.09%。m⁵C主要由NSUN家族(NSUN1-7)和DNA甲基转移酶(DNMT)家族(主要为DNMT2,特定情境下包括DNMT3A)催化。TET家族双加氧酶(如TET2)可氧化m⁵C生成5-羟甲基胞嘧啶及其进一步氧化产物,而ALKBH1则介导m⁵C的去甲基化。阅读器ALYREF和YBX1则分别介导甲基化mRNA的核输出及胞质稳定性 (图1)。
Ψ:尿苷的C5异构体,存在于rRNA、snRNA、tRNA和mRNA中(哺乳动物mRNA中Ψ/U比率0.2%-0.6%)。Ψ由PUS酶独立且位点特异性地发挥催化作用,或DKC1依赖H/ACA向导snoRNA指导修饰位点。TRUB1修饰线粒体和核编码RNA,RPUSD3/4和TRUB2则介导线粒体翻译及氧化磷酸化 (图1)。
A-to-I编辑:人类最普遍的RNA修饰,由ADAR1/2催化,主要发生在dsRNA区(如Alu序列)。ADAR1含Z-DNA/Z-RNA结合域,优先编辑短dsRNA底物 (图1)。
其他修饰:ac⁴C由NAT10催化,增强mRNA稳定性和翻译。Nm(2'-O-甲基化)存在于多种RNA中,影响稳定性和蛋白相互作用。m¹A存在于tRNA、rRNA和mRNA中,功能依赖环境(编码序列中抑制翻译,5'UTR中增强)。m⁷G由METTL1-WDR4安装,影响RNA稳定性和翻译 (图1)。
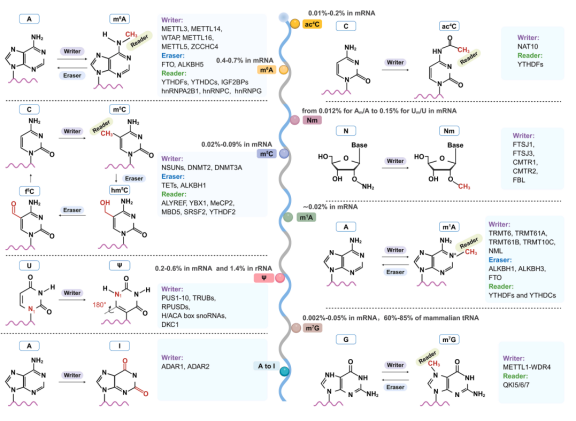
图1. RNA修饰、调控因子及机制架构全景图
3.机制图谱:RNA修饰与癌症特征
RNA修饰在癌症中常处于异常状态 (图2),进而影响癌症的增殖、干细胞特性、转移、代谢重编程、免疫逃逸和治疗耐药性 (图3,图4)。
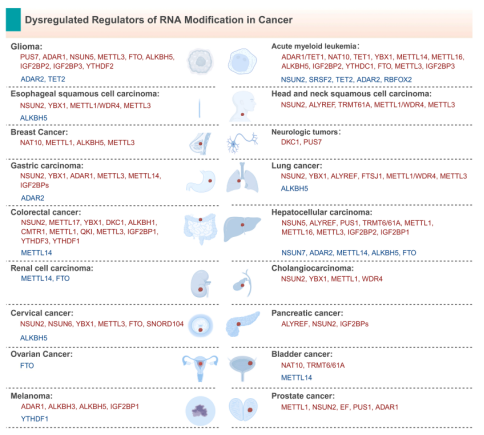
图2:人类癌症中RNA修饰的失调调节因子
3-1. 维持增殖信号和细胞存活
恶性肿瘤的特征包括不受控制的增殖及对生长抑制信号的抵抗,致癌mRNA表达增强是核心促生长机制之一。METTL3/METTL14通过m6A修饰MYC、SOX2、EGFR等转录本,经YTHDF1促进翻译或IGF2BP1-3稳定转录本(如KRAS、CDK6),从而维持增殖信号。IGF2BP亦可稳定m6A修饰的非编码RNA(如circNSUN2、lncRNA ZFAS1),进一步强化生长程序,然而,m6A亦可抑制增殖。YTHDF2促进EGFR等致癌mRNA降解,发挥负调控作用;RBFOX2则通过招募甲基转移酶复合物至启动子相关RNA,抑制分化并维持急性髓系白血病(AML)增殖。m6A对生长的调控具有高度情境依赖性。FTO在AML和胶质瘤中通过去甲基化稳定MYC、CEBPA转录本发挥促癌作用,但在肝细胞癌等中可能抑制生长。ALKBH5在胶质瘤和乳腺癌中促进增殖,却通过降低YAP mRNA的m6A水平抑制非小细胞肺癌生长。这些差异凸显了细胞类型、突变状态及环境信号所塑造的谱系特异性调控。非m6A修饰亦通过类似机制驱动肿瘤生长。例如,ALKBH3介导的m1A去甲基化可破坏肿瘤抑制性PML复合物;METTL1催化的m7G修饰增强tRNA稳定性及增殖相关基因(如EGFR通路基因)的翻译,促进肝内胆管癌进展。综上,RNA修饰通过激活促增殖通路或抑制生长抑制信号,在多种癌症中协调致癌程序,其核心作用使其成为潜在的治疗靶点。
3-2. 维持癌症细胞干性
癌症干细胞(CSC)具有长期自我更新与肿瘤再生能力,可逃避分化并导致治疗后复发,RNA修饰作为关键转录后调控机制,在维持干细胞样状态及肿瘤起始潜能中发挥核心作用。m6A修饰对CSC维持至关重要,METTL3通过增加FZD10的m6A修饰激活WNT/β-catenin及YAP1信号。m6A去甲基化酶ALKBH5通过上调TACC3、AXL、NANOG及FOXM1等靶标,促进AML中LSC/LIC自我更新并维持胶质母细胞瘤(GBM)和乳腺癌的未分化状态。非m6A修饰亦参与CSC自我更新调控。TET2缺陷导致Tspan13 mRNA m5C修饰增加以增强其稳定性,激活Tspan13-Cxcr4信号轴,促进LSC归巢、自我更新及白血病发生。tRNA m1A甲基转移酶TRMT6/TRMT61A通过促进PPARδ翻译增强胆固醇生物合成及Hedgehog信号,从而支持肝CSC自我更新。此外,Nm修饰与其他RNA标记协同调控CSC相关翻译;在肝细胞癌(HCC)中,m6A驱动的MIR4435-2HG稳定NOP58,降低rRNA 2'-O-甲基化水平,促进IRES依赖性致癌基因翻译,强化CSC特性。综上,RNA修饰通过转录后动态调控基因表达、稳定自我更新程序及抑制分化以维持CSC身份,从而保留肿瘤起始潜能,并为靶向治疗提供新策略。
3-3. 激活肿瘤侵袭和转移
RNA修饰调控肿瘤侵袭与转移,在前列腺癌中,m6A模式改变(如VCAN位点)与肿瘤侵袭及不良预后相关。METTL3通过调控HDGF、ZMYM1等促转移靶标及MAPK、YTHDF2-SOCS2通路,在结直肠癌、胃癌、肺癌、乳腺癌和肝癌中促进上皮-间质转化(EMT)、侵袭及转移定植。相反,METTL14在肝细胞癌、结直肠癌、肾癌和膀胱癌中抑制转移,通过下调SOX4、ARRDC4、Notch1等促转移mRNA并促进肿瘤抑制性miRNA加工,其作用差异可能源于METTL3的METTL14非依赖性功能或情境特异性调控。非编码RNA的转移驱动功能常依赖m6A修饰。circNSUN2通过IGF2BP2依赖性稳定HMGA2促进结直肠癌肝转移;circ-YAP经YTHDF3增加YAP衍生肽驱动肿瘤播散。METTL14甲基化的NEAT1和XIST经YTHDF2介导降解,其缺失导致RNA积累并促进肾癌和结直肠癌转移。三阴性乳腺癌中,去甲基化LINC00115逃避YTHDF2依赖性降解,激活HIF1α信号并驱动化疗抗性播散。非m6A修饰亦参与转移调控,NSUN5结合SMAD3启动子增强其染色质可及性及转录,激活EMT驱动肝细胞癌进展。miR-589-3p的A-to-I编辑将其靶标从PCDH9重定向至促侵袭ADAM12,体现RNA编辑的情境依赖性作用。ALKBH1通过对METTL3 mRNA去甲基化促进结直肠癌EMT及转移。综上,m6A与非m6A表观转录组机制协同调控癌细胞可塑性、侵袭及播散。
3-4. 重编程癌症代谢
癌细胞通过重编程葡萄糖、脂质及氨基酸代谢以适应营养匮乏和缺氧环境,RNA修饰通过调控mRNA稳定性、翻译及定位支持这种代谢可塑性。
糖酵解调控,癌细胞优先采用有氧糖酵解(Warburg效应)以支持合成代谢生长。METTL3通过调控HK2、SLC2A1、ENO2等限速酶在多种癌症中促进糖酵解;METTL14则呈情境依赖性,在胃癌中增强糖酵解,但在肝细胞癌(HCC)和肾癌中抑制糖酵解。FTO在白血病及实体瘤中促进糖酵解,却抑制肺腺癌中m6A依赖性MYC翻译;ALKBH5促进乳腺癌糖酵解,但在宫颈癌和肝癌中促进氧化磷酸化。
脂质代谢,在HCC中,METTL3稳定lncRNA LINC00958以上调脂质生成酶(FASN、ACC1);在结直肠癌中,METTL3通过上调POU6F2-AS1招募YBX1激活FASN。代谢物NADP可激活FTO酶活性,增强m6A去甲基化并促进脂肪生成。相反,ALKBH5在食管癌中下调ACLY和ACC1抑制脂肪酸合成。
氨基酸代谢,在急性髓系白血病(AML)中,METTL3/METTL14通过IGF2BP2增强MYC、GPT2及转运蛋白SLC1A5的稳定性,维持白血病增殖及白血病干细胞自我更新;而VHL缺陷肾癌中FTO缺失导致SLC1A5高甲基化降解,限制谷氨酰胺摄取。METTL16在AML中促进BCAT1/2 m6A修饰以增强支链氨基酸分解代谢;IGF2BP3稳定PHGDH和PSAT1强化丝氨酸驱动的核苷酸合成。非m6A修饰中,PUS7在MYCN扩增神经母细胞瘤中驱动代谢重编程;NSUN2在骨肉瘤中稳定FABP5 mRNA促进脂解;NAT10在三阴性乳腺癌(TNBC)中通过ac4C修饰上调JunB和LDHA增强糖酵解,并促进SLC1A4、HOXA9翻译以驱动丝氨酸摄取。综上,RNA修饰以营养和情境依赖性方式转录后调控代谢重编程,将环境信号与恶性生长代谢程序相偶联。
3-5. 免疫逃逸和微环境相互作用
为了逃避免疫监视,肿瘤创造了以抗原呈递受损、先天激活减弱和免疫抑制性浸润增加为特征的免疫冷微环境。RNA修饰以多种情境特异性方式调控这些过程,m6A修饰通过情境特异性机制调控免疫检查点表达。在AML中,FTO促进PD-L1、PD-L2和LILRB4的m6A依赖性上调,支持免疫逃逸和疾病进展。在黑色素瘤中,抑制ALKBH5增强抗PD-1疗法的效果。m6A还影响抗原呈递和干扰素(IFN)信号,在AML中,METTL3和IGF2BP3稳定CD47和LGALS9,损害T细胞和自然杀伤(NK)细胞识别。m6A还塑造IFN信号:METTL3/METTL14甲基化IFNB1 mRNA以进行YTHDF2介导的降解,该通路的缺失稳定IFNB1并提高IFN-β产生。总之,这些机制削弱了适应性抗肿瘤免疫。体外转录mRNA中的Ψ也被证明抑制先天免疫触发,突出了其在调控先天免疫反应中的作用。最近的研究还强调了非m6A RNA修饰的免疫调节潜力,包括A-to-I编辑、m1A、m5C和m7G。ADAR1介导的A-to-I编辑维持先天免疫耐受,其缺失减少IFN刺激的dsRNA的编辑,触发MDA5激活,提高I型IFN,并增强黑色素瘤中的抗肿瘤免疫,从而使肿瘤对PD-1阻断敏感并克服抵抗。ADAR1还可以驱动免疫逃逸:通过编辑DDX58,它诱导PTIR1,其募集去泛素化酶UCHL5以抑制免疫蛋白酶体活性,损害新抗原加工,并阻断T细胞识别,促进免疫治疗抵抗。总之,RNA修饰通过限制抗原识别、抑制先天感知和重塑免疫环境来塑造免疫冷表型,这些分层效应将表观转录组定位为免疫逃逸的核心驱动因素和恢复抗肿瘤免疫及克服免疫治疗抵抗的有前景的治疗轴。
3-6. 影响药物敏感性和治疗抵抗
治疗抵抗仍然是癌症的主要挑战,驱动复发、转移和不良结局。RNA修饰通过转录后控制DNA修复、凋亡、代谢和免疫逃逸通路,在调控对化疗、放疗、靶向治疗和免疫治疗的反应中发挥关键作用。作为主要的m6A写入器,METTL3促成治疗抵抗,在GSC中,它甲基化并稳定SOX2 mRNA以增强DNA修复并促进放射抵抗。METTL3在结直肠癌中增强LDHA翻译,支持糖酵解依赖性对5-氟尿嘧啶(5-FU)的抵抗,在HCC中甲基化FZD10 mRNA以促进乐伐替尼抵抗。m6A擦除器引入额外的抵抗控制,在AML中,R-2-羟基戊二酸(R-2HG)对FTO的抑制增加m6A水平并去稳定致癌转录本,从而使白血病细胞对全反式维甲酸(ATRA)、5-氮杂胞苷、地西他滨和柔红霉素敏感。m6A修饰的非编码RNA也驱动抵抗,在卵巢癌中,circPLPP4被m6A稳定并作为miR-136的海绵,导致PIK3R1表达增加和顺铂敏感性降低。乳腺癌干细胞样细胞暴露于紫杉醇的转录组分析揭示了与化疗抵抗相关的m6A调控lncRNA。非m6A RNA修饰也塑造治疗抵抗,NSUN2驱动的m5C甲基化,包括TREX2 mRNA的稳定化,限制细胞质dsDNA积累,抑制cGAS-STING信号,并在PD-L1阻断下促进免疫逃逸。总体而言,现有证据最有力地表明RNA 修饰与肿瘤干性、代谢重编程及免疫调控密切相关,凸显这些过程作为转化探索特别有前景的方向。
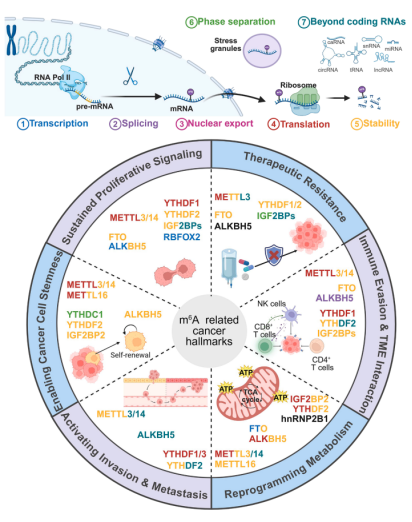
图3. m6A RNA修饰连接RNA生命周期与癌症特征
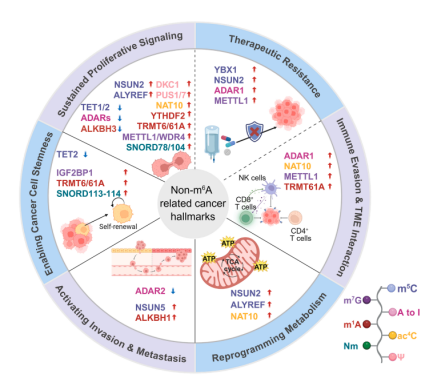
图4. 癌症标志物中非m6A RNA修饰的功能图谱
4.功能相互依赖性和新兴概念
4-1. 不同RNA修饰之间的串扰
RNA修饰并非孤立发挥作用,而是通过相互作用形成调控网络。m6A、A-to-I编辑、m5C及假尿苷(Ψ)之间的串扰在肿瘤中日益凸显 (图5上),m6A与A-to-I编辑的相互作用具有情境依赖性。在正常细胞中,m6A通过破坏ADAR1识别所需的dsRNA结构抑制A-to-I编辑;而在胶质母细胞瘤(GBM)中,METTL3介导的ADAR1 mRNA m6A修饰经YTHDF1识别促进其翻译,增强干扰素诱导的ADAR1p150表达及先天免疫调节。m6A与m5C在肿瘤相关通路中协同作用,METTL3介导的p21 mRNA m6A修饰促进邻近NSUN2催化的m5C,共修饰mRNA在应激下稳定性与翻译增强。系统水平上,m6A效应因子(METTL14、WTAP、YTHDF2)与m5C调控因子(NSUN4、ALYREF、YBX1)共表达,在线粒体代谢、翻译及染色质调控等肿瘤适应关键通路中富集。YTHDF2作为核心节点整合不同修饰信号,在B细胞恶性肿瘤中,其作为m6A读取器去稳定免疫相关转录本,而作为m5C读取器稳定线粒体ATP酶组分mRNA以支持肿瘤代谢。单分子定位证实m6A与m5C常共存于同一转录本。m6A与Ψ通过相反结构效应协同调控:m6A促进局部解旋,Ψ稳定碱基堆积,两者共存可进一步削弱RBP(如PUM2)结合,并对mRNA翻译产生分层效应。综上,RNA修饰通过空间邻近性、结构效应及共享读取器形成合作或竞争关系,阐明这些相互依赖性有助于揭示癌细胞利用RNA修饰微调基因表达、响应应激及维持适应性的机制,为靶向治疗提供新思路。
4-2. RNA修饰与染色质/DNA调控之间的串扰
RNA修饰与染色质表观遗传形成双向调控网络,在肿瘤中尤为关键 (图5下)。染色质特征可指导RNA修饰沉积:H3K36me3被METTL14识别,促进m6A在pre-mRNA外显子及3'UTR安装,偶联活性染色质与mRNA稳定性;组蛋白去甲基化酶KDM4C在AML中重塑ALKBH5位点染色质,上调该m6A擦除器以稳定AXL等致癌转录本,维持白血病干细胞。修饰RNA亦可反向调控染色质,FXR1招募TET1至m6A标记RNA,介导位点特异性DNA去甲基化及染色质开放;YTHDC2结合m6A修饰的HERVH RNA以维持DNA低甲基化。TET2氧化逆转录转座子RNA上的m5C,经MBD6募集去泛素化酶去除H2AK119ub促进染色质去抑制;而m6A标记的LINE1等重复RNA则招募YTHDC1,支架SETDB1/TRIM28沉积H3K9me3以强化沉默。RNA修饰亦转录后调控染色质修饰因子,METTL3介导的m6A促进组蛋白甲基转移酶mRNA降解,其缺失增加H3K4甲基化并破坏基因表达;CFL1作为METTL3辅因子增强超增强子RNA m6A,招募YTHDC2/MLL1促进H3K4me3,增加染色质可及性以驱动胰腺导管腺癌致癌转录。综上,RNA修饰通过招募组蛋白修饰因子、改变DNA甲基化及调控染色质相关转录本,整合并调节表观遗传状态,使癌细胞能够维持干性、抑制转座元件及激活谱系定义增强子,从而支持肿瘤进展与可塑性。
4-3. 单细胞和空间分辨率下的表观转录组异质性
单细胞及空间分析揭示了RNA修饰的广泛异质性。m6A和A-to-I等标记在同一组织内不同细胞间存在差异,构成肿瘤表型多样性的调控基础,单细胞m6A定位显示,批量平均值掩盖了甲基化化学计量的实质性变异。scDART-seq等发现细胞特异性m6A模式独立于转录本丰度,低丰度位点在特定亚群中高度修饰,这种异质性可能促进肿瘤谱系可塑性、环境适应性及治疗抵抗。然而,现有方法依赖工程化读取器-编辑器融合,限制其在原代样品中的应用,且面临背景噪声、RNA可及性及m5C/Ψ检测受限等挑战。SigRM等计算框架改进了单细胞m6A检测,可推断细胞类型特异性甲基化轨迹,但需进一步扩展至更多修饰类型。空间表观转录组学开始解析RNA修饰的组织架构。Select-seq在三阴性乳腺癌(TNBC)中定位A-to-I编辑,发现CSC富集区域GPX4编辑升高与铁死亡抵抗及预后相关,凸显空间RNA修饰的临床意义,但RNA降解、低通量及读数准确性等限制仍制约罕见事件的检测。随着技术进步,RNA修饰与细胞状态、谱系轨迹及肿瘤微环境的关联将日益清晰。高分辨率表观转录组图谱有助于解析肿瘤内异质性并揭示情境特异性脆弱性,与蛋白质组学、表观基因组学及空间染色质图谱的多维整合对深入理解癌细胞身份至关重要。
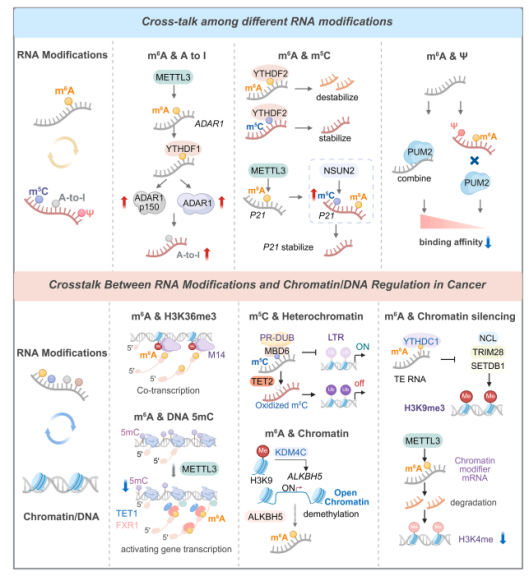
图5. 癌症中RNA修饰之间的串扰以及RNA与染色质调控之间的串扰
5.治疗见解和前景
认识到RNA修饰作为癌症表型的适应性调控因子,正在加速它们向疗法的转化。由于其动态和可逆性质,这些标记提供了一个可编程的干预层,其调控机制,包括写入器、擦除器、读取器和m6A和非m6A通路中的辅因子,代表了精准肿瘤学的有吸引力的切入点 (图6)。
5-1. 靶向m6A调控因子
针对失调的m6A调节因子(写入蛋白、擦除蛋白和阅读蛋白)的小分子抑制剂为癌症治疗开辟了新维度。FTO是研究最深入的,特别是在AML、GBM和肺癌中,早期抑制剂如Rhein和甲氯芬那酸恢复了m6A甲基化并抑制了致癌程序。后代药物如FB23-2和CS1/CS2提高了选择性和代谢稳定性。写入蛋白抑制也取得了进展,工具化合物STM2457在临床前系统中展示了有前景的抗白血病活性,毒性最小。首个进入人体试验的METTL3抑制剂STC-15目前处于I期,已报告了中期PK/PD和活性读数。靶向m6A阅读蛋白已成为癌症和免疫调节中有前景的治疗策略。
5-2. 靶向非m6A调控因子
鉴于m5C调控因子在癌症中的关键作用,靶向m5C"写入器"如NSUN2和NSUN3已成为日益关注的焦点。基于半胱氨酸定向活性蛋白质分析技术鉴定了一种立体选择性共价NSUN2抑制剂氮杂环丁烷丙烯酰胺,其阻断tRNA结合,降低m5C水平并抑制肿瘤进展。Nsun2-i4是一种靶向NSUN2的小分子抑制剂,抑制结直肠癌进展,显示其安全性和与PD-1的协同作用。目前,一些靶向假尿苷化酶的抑制剂已逐渐被表征。Mogroside IV-E被鉴定为特异性PUS1抑制剂,通过降低PUS1表达,对前列腺癌表现出强大的抗转移作用。C17是PUS7的化学抑制剂,可以防止PUS7介导的假尿苷化并抑制肿瘤发生。DKC1抑制剂(吡唑呋喃)和曲美替尼(MEK抑制剂)的组合已被证明协同抑制结直肠癌细胞的生长。
5-3. 联合策略:增强治疗效果
RNA修饰靶向药物主要作为增敏剂,通过破坏耐药回路增强免疫治疗、化疗、放疗及靶向治疗效果。免疫治疗方面,FTO抑制剂(CS1、CS2、Dac51)及ALKBH5抑制剂ALK-04在AML、肺癌和黑色素瘤中与T细胞疗法或PD-1/PD-L1抑制剂协同;YTHDF2抑制剂CCI-38可恢复CD19和MHC-II表达,增强CAR-T疗效。化疗耐药方面,FTO抑制(遗传学或R-2HG)恢复AML和胶质瘤对ATRA、阿扎胞苷等敏感性;METTL3敲低使胰腺癌对顺铂和5-FU敏感;YTHDF2抑制剂droperidol逆转紫杉醇耐药。放疗方面,METTL3稳定H2AX、SOX2等转录本介导NSCLC和胶质瘤耐药,而ALKBH5和FTO通过染色质重编程促进照射后存活;YTHDF2抑制剂DC-Y13-27靶向MDSC增强放射敏感性。靶向治疗方面,METTL3促进EGFR翻译增强黑色素瘤对BRAF抑制剂耐药;FTO驱动CML对BCR-ABL1 TKI的适应性耐药;FTO和ALKBH5耗竭通过FZD10高甲基化降低PARP抑制剂疗效。综上,RNA修饰靶向疗法可作为"反应放大器",强化现有治疗,跨表观转录组双重靶向(如m6A与A-to-I联合、写入器-读取器共抑制、m6A与m7G联合)是合理方向,需纳入药效学生物标志物及安全性监测。
5-4. 新兴技术和生物标志物潜力
在药理学和组合进展的基础上,最近的努力转向利用RNA修饰的调控逻辑进行诊断创新和精准干预。这些方法不是简单地抑制RNA修饰调控因子,而是利用RNA标记的序列特异性和动态性质来改善诊断、分类、治疗设计和疾病监测。表观转录组编辑中的互补进展也正在出现。虽然仍处于早期概念阶段,但CRISPR-Cas13和可编程RNA修饰写入器或擦除器等编辑工具已被提出用于选择性编辑靶转录本上的特定标记,提供了一条在不改变基因组的情况下进行转录后治疗控制的途径。m6A及其调控因子正在成为诊断和预测性生物标志物,m6A的前景以及METTL3、FTO和IGF2BP的表达水平已与多种癌症的预后、复发风险和治疗反应相关,m6A的差异修饰可以将PDAC患者分为具有不同预后结局的两种亚型。最近,He及其同事表明,肿瘤特异性m6A模式与肺腺癌和前列腺癌的疾病侵袭性和预后相关,进一步强调了m6A失调作为临床信息生物标志物的潜力。总之,这些进展强调了m6A机制作为将RNA生物学与临床应用联系起来的可编程层的潜力,随着这些技术的成熟,RNA修饰引导策略可能成为个性化RNA中心癌症护理的重要工具。
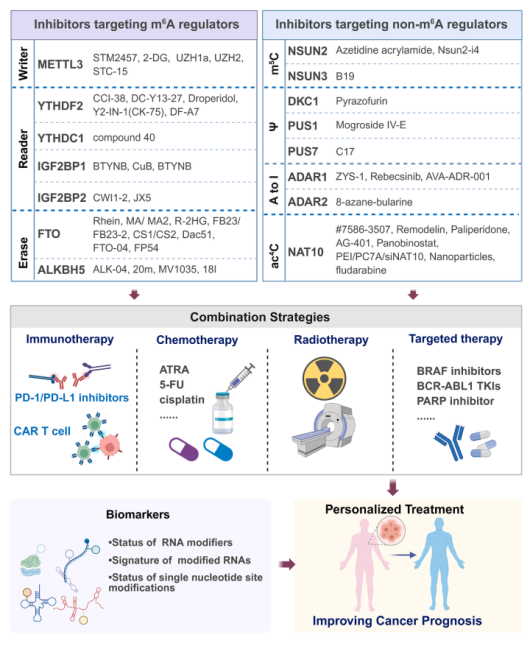
图6. 癌症中RNA修饰调节因子的治疗靶向与组合策略
6.结论、挑战和未来方向
RNA修饰已成为癌症生物学的关键调控因子,通过情境特异性和动态调控机制塑造RNA命运和功能。这些标记与MYC、PI3K/AKT和TP53等关键致癌信号通路相交,并影响几乎每一个癌症特征,从增殖和代谢重编程到免疫逃逸、干性和治疗抵抗。RNA修饰不是孤立发挥作用,而是在整合调控网络中发挥作用,其影响取决于细胞状态、环境信号以及与其他表观遗传和转录机制的交叉调控。从转化角度来看,RNA修饰提供了一个有前景但仍未充分开发的治疗前沿。写入器和擦除器具有酶活性且通常可药物化,几种靶向m6A和其他修饰调控因子的小分子抑制剂正在临床前开发中。展望未来,解决这些挑战将需要结合结构生物学、单细胞和空间表观转录组学、蛋白质基因组学和高通量扰动筛选的跨学科努力。阐明RNA修饰如何促成肿瘤可塑性、免疫逃逸和治疗抵抗将为精准肿瘤学解锁新机会。最终,将RNA修饰生物学整合到临床范式中具有重塑癌症诊断、预后和治疗的巨大潜力。
参考文献
Deng X, Wu D, Zhao Y, Qing Y, Wu H, Chen J. Epitranscriptomic control of cancer hallmarks: Functions, mechanisms, and therapeutics of RNA modifications. Cancer Cell. 2026 Jan 12;44(1):50-76. doi: 10.1016/j.ccell.2025.12.001.
 分享
本网站所有内容来源注明为“梅斯医学”或“MedSci原创”的文字、图片和音视频资料,版权均属于梅斯医学所有。非经授权,任何媒体、网站或个人不得转载,授权转载时须注明来源为“梅斯医学”。其它来源的文章系转载文章,或“梅斯号”自媒体发布的文章,仅系出于传递更多信息之目的,本站仅负责审核内容合规,其内容不代表本站立场,本站不负责内容的准确性和版权。如果存在侵权、或不希望被转载的媒体或个人可与我们联系,我们将立即进行删除处理。
在此留言






#RNA修饰# #表观转录组#
93 举报