
【协和医学杂志】抗血管生成联合免疫治疗在非小细胞肺癌中的增效机制
2026-07-12 协和医学杂志 协和医学杂志 发表于上海
本综述系统阐述抗血管生成药物联合PD-1/PD-L1抑制剂在NSCLC中的协同增效机制,以及该联合治疗策略在新辅助治疗领域的最新进展,以期为NSCLC的临床治疗提供参考。
近年来,以程序性死亡受体1(PD-1)/程序性死亡受体配体1(PD-L1)抑制剂为代表的免疫治疗改变了非小细胞肺癌(NSCLC)的治疗格局[1-3]。在晚期NSCLC患者中,免疫治疗联合化疗取得了显著疗效,并被确立为一线标准治疗方案,然而大部分患者生存获益有限,尤其PD-L1低表达人群[4-5]。在可切除NSCLC中,新辅助免疫治疗联合化疗显示出较传统化疗更高的病理缓解率,并可显著延长无进展生存期(PFS),然而仍有部分患者对治疗反应较差,亦有部分患者达到良好病理反应后仍出现复发转移[6]。
探索新的联合治疗策略以增强免疫治疗效果成为当前研究热点。其中,抗血管生成治疗联合免疫治疗受到广泛关注。IMpower 150研究首次证实,在晚期非鳞状NSCLC的PD-L1低表达亚组中,阿替利珠单抗(PD-L1抑制剂)联合贝伐珠单抗(抗血管生成药物)及化疗仍有显著疗效[7-8]。这提示靶向血管内皮生成因子(VEGF)的药物可增强PD-1/PD-L1抑制剂的抗肿瘤活性,其协同增效机制备受关注。基于此,本综述系统阐述抗血管生成药物联合PD-1/PD-L1抑制剂在NSCLC中的协同增效机制,以及该联合治疗策略在新辅助治疗领域的最新进展,以期为NSCLC的临床治疗提供参考。
1 血管生成与抗肿瘤免疫的反馈调控
肿瘤早期快速生长导致局部缺氧,从而启动其内部异常血管生成[9-10]。在缺氧微环境中,肿瘤细胞及多种免疫抑制性细胞,包括肿瘤相关巨噬细胞(TAMs)和癌症相关成纤维细胞(CAFs)等,可大量分泌VEGF、血小板衍生生长因子(PDGF)及成纤维细胞生长因子(FGF)等促血管生成因子,诱导形成大量结构扭曲、通透性异常增高的新生血管。然而,这些异常血管无法有效输送氧气和营养物质,导致微环境缺氧持续存在甚至加重,形成恶性循环,最终促进肿瘤进展、转移及治疗抵抗。
既往研究表明,肿瘤血管生成与抗肿瘤免疫反应之间存在密切的双向调控关系。一方面,异常血管生成直接或间接抑制抗肿瘤免疫反应;另一方面,肿瘤免疫抑制性微环境亦可进一步加剧异常血管生成[11]。
1.1 异常血管结构促进免疫抑制
肿瘤新生血管结构异常、通透性过高及周细胞覆盖不足,导致组织间液压力升高,T细胞在跨内皮迁移过程中需克服更大的压力梯度,从而阻碍免疫细胞向肿瘤组织浸润,直接促进免疫抑制性微环境形成[12]。此外,异常血管灌注效率低下,难以缓解甚至加重肿瘤微环境缺氧,从而间接抑制抗肿瘤免疫反应[13]。缺氧可通过多种途径削弱抗肿瘤免疫功能,主要体现在以下三个方面:
1 抑制T细胞浸润与功能,缺氧诱发线粒体应激,削弱CD8+ T细胞的增殖能力和细胞毒活性;同时通过缺氧诱导因子-1α介导的信号通路上调T细胞表面PD-1等抑制性受体的表达,诱导T细胞耗竭,并增强肿瘤细胞和基质细胞的PD-L1表达,从而进一步抑制效应T细胞功能[14-15]。
2 促进免疫抑制性细胞招募,缺氧可上调CXCL12、CCL26、CCL28等趋化因子的表达,招募M2型TAMs、髓系来源抑制细胞(MDSCs)以及调节性T细胞(Tregs),进一步强化免疫抑制微环境[16]。
3 代谢重编程导致酸性微环境形成,加剧免疫抑制。缺氧条件下糖酵解增强,乳酸大量堆积形成酸性微环境,不仅直接抑制细胞毒性T细胞的活性,还可促进TAMs向M2型促肿瘤表型极化,从而进一步削弱抗肿瘤免疫应答[17]。
1.2 肿瘤内皮细胞促进免疫抑制
肿瘤内皮细胞具有高度表型异质性,不仅是血管结构的组成部分,还具有重要的免疫调节功能。部分内皮细胞亚群具备抗原呈递和免疫细胞募集能力,在调控肿瘤免疫微环境中发挥关键作用[18]。一项大规模单细胞转录组学研究系统绘制了人类和小鼠多种肿瘤的内皮细胞图谱,研究鉴定出一类表达主要组织相容性复合体Ⅰ/Ⅱ类分子的毛细血管内皮亚群,该亚群在一定程度上发挥抗原呈递细胞样功能,参与免疫细胞招募[19] 。此外,该研究还指出静脉内皮细胞可能在高内皮微静脉(HEV)结构转化中发挥关键作用,从而促进淋巴细胞向肿瘤组织浸润。
在促血管生成因子的持续刺激下,肿瘤内皮细胞逐渐呈现免疫抑制性表型,从以下多个层面构建血管相关免疫抑制屏障:
1 下调ICAM-1、VCAM-1等关键黏附分子,显著削弱T细胞、自然杀伤(NK)细胞和树突状细胞(DCs)等免疫细胞的黏附与跨内皮迁移能力,阻断其外渗并有效募集至肿瘤内部[20];
2 异常表达免疫检查点分子(如PD-L1等),直接抑制细胞毒性T细胞的活化与效应功能;
3 在VEGF作用下表达凋亡诱导配体FasL,选择性诱导细胞毒性T细胞凋亡,而Tregs因高表达抗凋亡蛋白而得以逃逸,从而加剧免疫失衡[21];
4 分泌免疫抑制性细胞因子,如转化生长因子-β(TGF-β)、前列腺素E2等,促进MDSCs向肿瘤浸润,并诱导Tregs分化,从而强化局部免疫抑制状态。
1.3 促血管生成因子促进免疫抑制
VEGF可直接调控免疫细胞的分化与功能,帮助塑造免疫抑制性肿瘤微环境[22-24]。主要机制如下:
1 直接抑制T细胞功能,VEGF阻碍T细胞增殖与分化,削弱其细胞毒效应,并上调PD-1等抑制性免疫检查点分子的表达,从而诱导T细胞耗竭;
2 损害抗原呈递细胞功能,VEGF与单核细胞表面的VEGF受体(VEGFR)结合,其中主要是VEGFR2,抑制其向DCs分化,并通过抑制核因子κB降低DCs的成熟与抗原呈递能力,从而促进肿瘤免疫逃逸;
3 促进免疫抑制性细胞募集与扩增,VEGF本身具有趋化作用,其与免疫抑制性细胞表面的VEGFR结合后,可诱导肿瘤细胞及基质细胞分泌多种趋化因子, 促进Tregs、MDSCs等向肿瘤部位富集,这些细胞进一步呈现促肿瘤、促血管生成表型;
4 诱导TAMs向M2型极化,VEGF可通过作用于TAMs表面的VEGFR1,促进其向M2型免疫抑制表型转化;
5 促进淋巴管生成与免疫逃逸,VEGF介导的淋巴管生成不仅加速肿瘤细胞向区域淋巴结转移,还可削弱局部免疫监视,从而促进肿瘤进展。
反之,免疫抑制性肿瘤微环境亦可进一步促进异常血管生成。MDSCs、Tregs及TAMs等免疫抑制性细胞可持续分泌VEGF、TGF-β、白细胞介素(IL)-10等促血管生成因子,协同增强肿瘤血管生成,并进一步招募更多免疫抑制性细胞,形成“血管生成-免疫抑制”相互促进的恶性反馈环路[25]。
2 抗血管生成治疗联合免疫治疗的增效机制
2.1 抗血管生成治疗解除VEGF介导的免疫抑制
抗血管生成治疗通过抑制VEGF信号通路,解除其对免疫系统的多重抑制,从而增强免疫治疗效果。小细胞肺癌小鼠模型研究显示,VEGF抑制剂与PD-L1抑制剂联合治疗具有协同作用,疗效优于任一单药治疗[26]。进一步机制研究揭示,抗血管生成治疗通过降低VEGF水平,阻断VEGF介导的T细胞耗竭程序,从而增强PD-L1抑制剂的免疫激活效果,后续的小细胞肺癌外周血样本分析亦支持这一发现。
此外,VEGF抑制剂还具有多重免疫调节功能:
1 促进DCs的正常成熟,恢复其抗原提呈能力[27];
2 减少MDSCs和Tregs的招募与分化,逆转免疫抑制性微环境[28];
3 诱导TAMs重编程,使其由M2型促瘤表型向M1型抑瘤表型转化[11]。
这些均有利于增强抗肿瘤免疫应答。
2.2 抗血管生成治疗重塑肿瘤免疫微环境
血管正常化是指抗血管生成治疗诱导肿瘤异常血管向相对成熟状态转化的过程,主要包括以下三个维度:一是结构重塑,改善血管周细胞覆盖、促进内皮细胞成熟,使血管结构更稳定;二是功能改善,降低血管渗漏、恢复组织有效血流灌注,从而缓解组织缺氧和酸性物质堆积;三是免疫通行性恢复,上调黏附分子表达、促进免疫细胞跨内皮迁移,增加肿瘤内免疫细胞浸润。通过诱导这一过程,抗血管生成治疗可系统性重塑肿瘤免疫微环境,从而有效增强抗肿瘤免疫应答[29-31]。
基于单细胞转录组学的研究揭示,VEGF抑制剂可显著降低增殖活跃的内皮细胞亚群比例,快速切断其核心生长信号,同时上调与血管屏障功能及抗原呈递相关的基因表达,从而重塑内皮细胞的表型组成,驱动肿瘤内皮细胞向静止、成熟状态转化[18,32]。这表明,VEGF抑制剂不仅能够抑制新生血管形成,还可促进血管结构成熟,从而提升其稳定性。这一过程对于免疫功能的发挥至关重要,肿瘤内皮细胞的表型重塑和免疫调节功能可能因此直接影响免疫治疗响应。
血管正常化通过减少血管渗漏、降低组织间液压改善灌注,进而缓解肿瘤微环境缺氧,并促进酸性代谢物的清除,最终改善局部免疫微环境。这一过程直接促进了抗肿瘤免疫细胞的浸润、活化与功能,同时减少了免疫抑制性细胞的募集。例如,在肺癌小鼠模型中[30,33],免疫治疗联合抗血管生成治疗可有效改善血管结构,显著增加CD8+ T细胞浸润,并降低Tregs、MDSCs和M2型TAMs占比,从而提升抗肿瘤效果并延长生存。
更重要的是,血管正常化伴随周细胞覆盖增加及毛细血管后微静脉向HEV转化,从而高效介导CD8+ T细胞浸润,并可能促进三级淋巴结构(TLS)的形成,在肿瘤局部建立起一个高度组织化的免疫激活枢纽,从而进一步增强抗肿瘤免疫应答[31,33-34]。成熟的TLS可通过免疫细胞分泌的细胞因子进一步反馈促进血管正常化,从而形成良性循环。在肺癌、乳腺癌等临床前模型中,抗血管生成药物与PD-1/PD-L1抑制剂联合应用可克服其耐药性并显著提升疗效,其中HEV结构的出现与治疗响应密切相关[27,34-35]。此外,一项针对免疫治疗联合化疗耐药的NSCLC多组学研究指出,缺氧微环境可抑制TLS的成熟,并与不良预后相关,从空间细胞互作层面揭示了改善灌注与血管功能对于提升免疫治疗效果的关键作用[36]。
2.3 免疫治疗诱导肿瘤血管正常化
研究发现,PD-1/PD-L1抑制剂在激活抗肿瘤免疫应答的同时,还可通过免疫细胞分泌的细胞因子诱导血管正常化,形成正向反馈[37]。其核心机制在于活化的T细胞分泌干扰素-γ(IFN-γ),进而抑制内皮细胞表达VEGF,并招募NG2+周细胞以增强血管稳定性,从而促进肿瘤血管正常化。此外,IFN-γ还可上调内皮黏附分子及趋化因子的表达,促进免疫细胞向肿瘤微环境浸润。该研究通过公共数据库分析发现,免疫相关信号通路与血管生成相关基因之间存在显著关联,并在患者来源异种移植模型中利用辅助性T细胞过继转移验证了上述机制,进一步发现血管正常化反过来能够促进T细胞向肿瘤内部浸润,由此形成了一个自我增强的“免疫激活-血管正常化-免疫细胞募集”闭环。这种肿瘤血管正常化与抗肿瘤免疫之间的双向调节机制,为联合应用免疫治疗与抗血管生成治疗提供了重要理论基础(图1)。
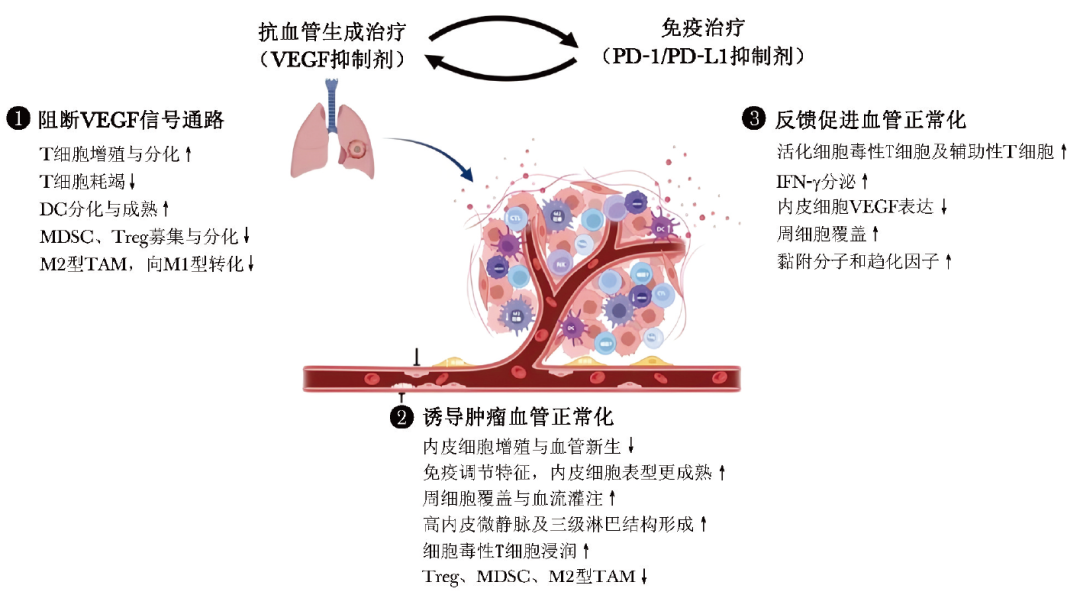
图1 抗血管生成联合免疫治疗在非小细胞肺癌中的增效机制
VEGF:血管内皮生成因子;PD-1/PD-L1:程序性死亡受体1/程序性死亡受体配体1;DC:树突状细胞;MDSC:髓系来源抑制细胞;Treg:调节性T细胞;TAM:肿瘤相关巨噬细胞;IFN-γ:干扰素γ
上述增效机制主要源于临床前模型探索,笔者提出以下2个关键假说:
1 血管正常化程度可能决定免疫细胞浸润水平和治疗响应;
2 特定的空间免疫-血管互作模式可作为联合治疗疗效的预测标志物,尽管在部分实体瘤的临床标本及大型临床试验的探索性分析中,已观察到血管正常化标志物与免疫细胞浸润及疗效的正相关性,间接证实了上述增效机制,但肿瘤类型依赖性仍是不可忽视的复杂因素。
因此,未来研究需立足NSCLC特有的微环境特征,整合运用空间转录组、空间蛋白质组等技术,评估血管正常化状态及空间结构特征,进而筛选出指导个体化联合治疗的疗效预测标志物。
3 抗血管生成治疗联合免疫治疗用于NSCLC的治疗现状
肿瘤血管生成通过上述一系列机制促进免疫抑制性微环境形成,为抗血管生成治疗联合免疫治疗提供了核心理论基础。目前,认为VEGF与VEGFR2结合是血管生成最主要的调节通路,通过抑制VEGF/VEGFR信号通路阻断异常血管形成,重塑肿瘤免疫微环境,逆转免疫抑制状态,从而显著增强免疫检查点抑制剂的疗效。根据作用机制的不同,目前的抗血管生成药物主要包括以下两类:一类是阻断VEGF与VEGFR相互作用的单克隆抗体(如贝伐珠单抗),另一类是靶向该通路下游信号转导的小分子酪氨酸激酶抑制剂(如安罗替尼)[38]。
3.1 晚期NSCLC
近年来,部分临床研究探索将抗血管生成与免疫治疗联合用于晚期NSCLC,展现出良好的治疗潜力。IMpower 150研究显示,相较于贝伐珠单抗联合化疗,阿替利珠单抗联合贝伐珠单抗及化疗的方案能够更好地改善晚期非鳞状NSCLC患者的预后,获美国国家综合癌症网络(NCCN)指南一线治疗推荐[8]。
另一项Ⅲ期临床试验APPLE研究则首次以“头对头”比较的方式评估在阿替利珠单抗与化疗的基础上加用贝伐珠单抗的疗效[39]。尽管该研究在总人群中未达到主要终点,但亚组分析结果提示,贝伐珠单抗可能为表皮生长因子受体(EGFR)突变型NSCLC患者带来额外临床获益,尤其是既往接受过靶向治疗、携带敏感EGFR突变的非鳞状NSCLC患者。这一发现提示VEGF信号通路在驱动基因突变阳性和阴性患者的肿瘤微环境中可能发挥不同作用。
依沃西单抗作为一种靶向PD-1和VEGF的双特异性抗体,通过单一分子实现了对双靶点的空间共阻断。机制研究表明,VEGF与PD-1可互相增强抗体对另一靶点的结合亲和力,从而在肿瘤局部实现优于传统双单抗联合疗法的药代动力学分布[40]。在多项针对晚期NSCLC的临床研究中,依沃西单抗显示出令人鼓舞的疗效,进一步印证了抗血管生成联合免疫治疗的协同增效优势[41-43]。 HARMONi-2研究是首个在PD-L1阳性晚期NSCLC患者中,“头对头”对比双特异性抗体(依沃西单抗)与帕博利珠单抗标准治疗的Ⅲ期临床试验,结果显示前者显著延长了患者的中位PFS( 11.1个月比5.8个月),疾病进展或死亡风险降低了49%(HR=0.51,95% CI:0.38~0.69,P<0.0001),展现出颠覆性疗效[43]。
HARMONi-6研究则进一步在晚期鳞癌中证实了依沃西单抗联合化疗的显著价值,其中位PFS显著优于PD-1单抗联合化疗组(11.1个月比6.9个月,HR=0.60,95% CI:0.46~0.78,P<0.0001)[44]。安全性方面,依沃西单抗凭借Fc段的改造成功,突破了传统抗血管生成抗体在肺鳞癌治疗中的出血风险禁忌。在上述两项研究中,依沃西单抗组3级及以上出血事件发生率均低于2%,与对照组相当,显示出良好的耐受性。
3.2 可切除NSCLC
基于依沃西单抗在晚期NSCLC患者中的积极疗效,目前已应用于可切除NSCLC围术期治疗领域。Ⅱ期临床研究AK112-205(NCT05247684)共纳入60例ⅡA~ⅢB期可切除NSCLC患者,其中49例术前接受依沃西单抗联合化疗治疗(每3周1次,3~4周期),11例接受依沃西单药治疗(3~4周期)。
末次治疗后4~6周内进行手术,并在术后继续接受依沃西单抗(16周期)维持治疗。结果显示,联合治疗组病理完全缓解(pCR)率达43.6%、主要病理缓解(MPR)率达71.8%[45],远超既往围术期免疫治疗联合化疗Ⅲ期临床试验(18.1%~25.3%,30.2%~35.4%)[1-2,46-47]。且病理缓解的获益趋势在各亚组中高度一致,不受肿瘤分期或PD-L1表达水平的影响。
截至2024年8月,联合治疗组增至55例完成手术,pCR率和MPR率分别提升至52.7%和72.7%,尤其是鳞癌亚组(pCR率达63.6%),创历史新高。安全性方面,未见因治疗相关不良事件导致手术延迟或取消的病例,且未报告伤口愈合并发症,但该研究未报道出血、高血压、蛋白尿等抗血管生成治疗相关副反应的发生率。
此外,一项已注册的Ⅱ期NEOINSPIRE研究(NCT07086326)正在开展,将直接对比依沃西单抗联合化疗与PD-1单抗联合化疗的疗效及安全性。另一项抗PD-1/VEGF双特异性抗体(JS207)联合铂类双药化疗用于Ⅱ~Ⅲ期可切除NSCLC患者的疗效与安全性研究(NCT06944470)也正在积极开展中。
小分子抗血管酪氨酸激酶抑制剂联合免疫治疗也展现出良好前景。多中心单臂Ⅱ期TD-neoFOUR研究率先探索了安罗替尼联合PD-1单抗及化疗在可切除NSCLC围手术期治疗中的临床潜力[48]。该研究纳入45例ⅡA~ⅢB期患者,采用信迪利单抗、安罗替尼联合化疗方案进行3周期新辅助治疗,术后以信迪利单抗维持治疗1年。结果显示,完成手术的41例患者中, pCR率和MPR率分别达到57.8%和66.7%,展现出显著的病理缓解。安全性方面,整体耐受性良好,仅1例患者因不良反应终止新辅助治疗;除常见的血液学毒性及胃肠道反应外,出血事件发生率仅为4.4%,且均为1~2级,未观察到手术延迟或非预期的大出血事件。
该研究还报告了术后并发症的发生情况,3级及以上并发症发生率为19.5%,主要包括胸腔积液(14.6%)、肺炎(7.3%)和气胸(7.3%),总体上未高于传统免疫治疗联合化疗方案。随后开展的Ⅱ期随机对照试验(ALTER-L043)通过横向对比进一步证实了该方案的增效价值[49]。研究结果显示,PD-1单抗联合安罗替尼及化疗组的pCR率达52.0%、MPR率高达76.0%,优于PD-1单抗联合化疗组(pCR率 50.0%,MPR率57.7%)以及PD-1单抗联合安罗替尼组(pCR率38.1%,MPR率52.4%)。此外,安全性分析显示,安罗替尼的引入未增加手术延迟率或围术期出血风险:三联治疗组中仅1例因治疗不良反应导致手术取消,仅1例出现1~2级咯血事件。发生率最高的3级及以上不良反应事件为高血压,但发生率仅为 6.7%,总体临床可控。
综上所述,抗血管生成治疗与免疫治疗的联合方案可产生显著的协同增效作用,在围手术期治疗中显示出广阔应用前景,有望为可切除NSCLC患者提供新的治疗选择。
4 小结与展望
抗血管生成治疗与免疫治疗相结合可帮助晚期NSCLC患者克服免疫治疗耐药,显著降低疾病进展与死亡风险,在可切除患者的围术期治疗中同样具有应用前景。机制方面,抗血管生成治疗可弥补免疫治疗的缺陷,通过解除VEGF介导的免疫抑制并诱导血管正常化来缓解肿瘤缺氧,有望克服免疫治疗在原发耐药、免疫冷肿瘤亚型中的疗效瓶颈,为扩大围手术期治疗的获益人群提供新的可能,为疗效预测生物标志物的探索提供理论基础。安全性方面,以依沃西单抗为代表的PD-1/VEGF双抗通过结构优化,显著降低了传统抗血管药物的出血风险,临床安全性可控。尽管围术期应用中的安全性数据尚不成熟,通过合理把握治疗时序和严密监测不良反应,抗血管生成联合免疫治疗有望实现疗效与安全性双赢。
然而,目前该联合治疗策略仍面临以下挑战:(1)肿瘤可通过激活VEGF以外的促血管生成通路实现血管重建,从而产生耐药;(2)虽然抗血管生成治疗可在短期内诱导血管正常化,但长期或过度抑制可能引起内皮细胞表型适应,甚至促进更复杂的血管网络形成,反而阻碍免疫细胞浸润。因此,如何适时联合或序贯治疗以发挥最大化协同效应是当前面临的难题;(3)血管正常化的过程依赖内皮细胞、基质细胞和免疫细胞的空间协调作用,但相关空间结构研究仍较匮乏。未来研究可结合单细胞多组学与空间转录组技术,在治疗前、治疗中、手术前等多个时间点采样,动态解析肿瘤微环境的空间互作与血管正常化过程。从而为理解血管-免疫互作提供更为全面广阔的视角,并为围术期精准治疗策略提供依据。
参考文献
[1]Forde P M, Spicer J, Lu S, et al. Neoadjuvant nivolumab plus chemotherapy in resectable lung cancer[J]. N Engl J Med, 2022, 386(21): 1973-1985.
[2]Wakelee H, Liberman M, Kato T, et al. Perioperative pembrolizumab for early-stage non-small-cell lung cancer[J]. N Engl J Med, 2023, 389(6): 491-503.
[3]Provencio M, Nadal E, Insa A, et al. Neoadjuvant chemotherapy and nivolumab in resectable non-small-cell lung cancer (NADIM): an open-label, multicentre, single-arm, phase 2 trial[J]. Lancet Oncol, 2020, 21(11): 1413-1422.
[4]Novello S, Kowalski D M, Luft A, et al. Pembrolizumab plus chemotherapy in squamous non-small-cell lung cancer: 5-year update of the phase Ⅲ KEYNOTE-407 study[J]. J Clin Oncol, 2023, 41(11): 1999-2006.
[5]Garassino M C, Gadgeel S, Speranza G, et al. Pembrolizumab plus pemetrexed and platinum in nonsquamous non-small-cell lung cancer: 5-year outcomes from the phase 3 KEYNOTE-189 study[J]. J Clin Oncol, 2023, 41(11): 1992-1998.
[6]Forde P M, Spicer J D, Provencio M, et al. Overall survival with neoadjuvant nivolumab plus chemotherapy in lung cancer[J]. N Engl J Med, 2025, 393(8): 741-752.
[7]Reck M, Mok T S K, Nishio M, et al. Atezolizumab plus bevacizumab and chemotherapy in non-small-cell lung cancer (IMpower150): key subgroup analyses of patients with EGFR mutations or baseline liver metastases in a rando-mised, open-label phase 3 trial[J]. Lancet Respir Med, 2019, 7(5): 387-401.
[8]Socinski M A, Jotte R M, Cappuzzo F, et al. Atezolizumab for first-line treatment of metastatic nonsquamous NSCLC[J]. N Engl J Med, 2018, 378(24): 2288-2301.
[9]Adams R H, Alitalo K. Molecular regulation of angiogenesis and lymphangiogenesis[J]. Nat Rev Mol Cell Biol, 2007, 8(6): 464-478.
[10]Carmeliet P, Jain R K. Angiogenesis in cancer and other diseases[J]. Nature, 2000, 407(6801): 249-257.
[11]Kabir A U, Subramanian M, Kwon Y, et al. Linking tumour angiogenesis and tumour immunity[J]. Nat Rev Immunol, 2026, 26(1): 35-51.
[12]Cooke V G, LeBleu V S, Keskin D, et al. Pericyte depletion results in hypoxia-associated epithelial-to-mesenchymal transition and metastasis mediated by met signaling pathway[J]. Cancer Cell, 2012, 21(1): 66-81.
[13]Singleton D C, Macann A, Wilson W R. Therapeutic targeting of the hypoxic tumour microenvironment[J]. Nat Rev Clin Oncol, 2021, 18(12): 751-772.
[14]Scharping N E, Rivadeneira D B, Menk A V, et al. Mitochondrial stress induced by continuous stimulation under hypoxia rapidly drives T cell exhaustion[J]. Nat Immunol, 2021, 22(2): 205-215.
[15]Mahiddine K, Blaisdell A, Ma S, et al. Relief of tumor hypoxia unleashes the tumoricidal potential of neutrophils[J]. J Clin Invest, 2020, 130(1): 389-403.
[16]Facciabene A, Peng X H, Hagemann I S, et al. Tumour hypoxia promotes tolerance and angiogenesis via CCL28 and Treg cells[J]. Nature, 2011, 475(7355): 226-230.
[17]Colegio O R, Chu N Q, Szabo A L, et al. Functional polarization of tumour-associated macrophages by tumour-derived lactic acid[J]. Nature, 2014, 513(7519): 559-563.
[18]Goveia J, Rohlenova K, Taverna F, et al. An integrated gene expression landscape profiling approach to identify lung tumor endothelial cell heterogeneity and angiogenic candidates[J]. Cancer Cell, 2020, 37(1): 21-36.e13.
[19]Pan X, Li X, Dong L, et al. Tumour vasculature at single-cell resolution[J]. Nature, 2024, 632(8024): 429-436.
[20]Li Y Y, Yang L, Liu Z D. Combination of immune checkpoint inhibitors and anti-angiogenic agents: an emerging strategy for cancer therapy[J]. Crit Rev Oncol Hematol, 2025, 215: 104883.
[21]Motz G T, Santoro S P, Wang L P, et al. Tumor endothelium FasL establishes a selective immune barrier promoting tolerance in tumors[J]. Nat Med, 2014, 20(6): 607-615.
[22]De Palma M, Biziato D, Petrova T V. Microenvironmental regulation of tumour angiogenesis[J]. Nat Rev Cancer, 2017, 17(8): 457-474.
[23]Cao Y H, Langer R, Ferrara N. Targeting angiogenesis in oncology, ophthalmology and beyond[J]. Nat Rev Drug Discov, 2023, 22(6): 476-495.
[24]Pérez-Gutiérrez L, Ferrara N. Biology and therapeutic targeting of vascular endothelial growth factor A[J]. Nat Rev Mol Cell Biol, 2023, 24(11): 816-834.
[25]Rahma O E, Hodi F S. The interp between tumor angiogenesis and immune suppression[J]. Clin Cancer Res, 2019, 25(18): 5449-5457.
[26]Meder L, Schuldt P, Thelen M, et al. Combined VEGF and PD-L1 blockade displays synergistic treatment effects in an autochthonous mouse model of small cell lung cancer[J]. Cancer Res, 2018, 78(15): 4270-4281.
[27]Allen E, Jabouille A, Rivera L B, et al. Combined antiangiogenic and anti-PD-L1 therapy stimulates tumor immunity through HEV formation[J]. Sci Transl Med, 2017, 9(385): eaak9679.
[28]Terme M, Pernot S, Marcheteau E, et al. VEGFA-VEGFR pathway blockade inhibits tumor-induced regulatory T-cell proliferation in colorectal cancer[J]. Cancer Res, 2013, 73(2): 539-549.
[29]Daum S, Decristoforo L, Mousa M, et al. Unveiling the immunomodulatory dance: endothelial cells' function and their role in non-small cell lung cancer[J]. Mol Cancer, 2025, 24(1): 21.
[30]Jain R K. Normalizing tumor vasculature with anti-angiogenic therapy: a new paradigm for combination therapy[J]. Nat Med, 2001, 7(9): 987-989.
[31]Lei L Z, Long J, Chen C G, et al. Tumor vasculature-mediated formation of tertiary lymphoid structures: unraveling spatiotemporal coupling to optimize vasculo-immunotherapy[J]. Biochem Pharmacol, 2026, 244: 117574.
[32]Zhao Q, Eichten A, Parveen A, et al. Single-cell transcriptome analyses reveal endothelial cell heterogeneity in tumors and changes following antiangiogenic treatment[J]. Cancer Res, 2018, 78(9): 2370-2382.
[33]Lin Q X, Song W W, Xie W X, et al. Sequential treatment of anti-PD-L1 therapy prior to anti-VEGFR2 therapy contributes to more significant clinical benefits in non-small cell lung cancer[J]. Neoplasia, 2025, 59: 101077.
[34]He B, Dymond L, Wood K H, et al. Immune priming and induction of tertiary lymphoid structures in a cord-blood humanized mouse model of gastrointestinal stromal tumor[J]. Oncoimmunology, 2024, 13(1): 2406576.
[35]Johansson-Percival A, He B, Li Z J, et al. De novo induction of intratumoral lymphoid structures and vessel normalization enhances immunotherapy in resistant tumors[J]. Nat Immunol, 2017, 18(11): 1207-1217.
[36]Yan Y L, Sun D Q, Hu J J, et al. Multi-omic profiling highlights factors associated with resistance to immuno-chemotherapy in non-small-cell lung cancer[J]. Nat Genet, 2025, 57(1): 126-139.
[37]Tian L, Goldstein A, Wang H, et al. Mutual regulation of tumour vessel normalization and immunostimulatory reprogramming[J]. Nature, 2017, 544(7649): 250-254.
[38]Liu Z L, Chen H H, Zheng L L, et al. Angiogenic signaling pathways and anti-angiogenic therapy for cancer[J]. Signal Transduct Target Ther, 2023, 8(1): 198.
[39]Shiraishi Y, Kishimoto J, Sugawara S, et al. Atezolizumab and Platinum plus pemetrexed with or without bevacizumab for metastatic nonsquamous Non-Small cell lung cancer: a phase 3 randomized clinical trial[J]. JAMA Oncol, 2024, 10(3): 315-324.
[40]Zhong T T, Zhang L Z, Huang Z L, et al. Design of a fragment crystallizable-engineered tetravalent bispecific antibody targeting programmed cell death-1 and vascular endothelial growth factor with cooperative biological effects[J]. iScience, 2024, 28(3): 111722.
[41]Wang L, Luo Y Z, Ren S X, et al. A phase 1b study of ivonescimab, a programmed cell death protein-1 and vascular endothelial growth factor bispecific antibody, as first- or second-line therapy for advanced or metastatic immunotherapy-naive NSCLC[J]. J Thorac Oncol, 2024, 19(3): 465-475.
[42]Zhao Y Y, Chen G, Chen J H, et al. AK112, a novel PD-1/VEGF bispecific antibody, in combination with chemotherapy in patients with advanced non-small cell lung cancer (NSCLC): an open-label, multicenter, phase Ⅱ trial[J]. EClinicalMedicine, 2023, 62: 102106.
[43]Xiong A W, Wang L, Chen J H, et al. Ivonescimab versus pembrolizumab for PD-L1-positive non-small cell lung cancer (HARMONi-2): a randomised, double-blind, phase 3 study in China[J]. Lancet, 2025, 405(10481): 839-849.
[44]Chen Z W, Yang F, Jiang Z, et al. Ivonescimab plus chemotherapy versus tislelizumab plus chemotherapy as first-line treatment for advanced squamous non-small-cell lung cancer (HARMONi-6): a randomised, double-blind, phase 3 trial[J]. Lancet, 2025, 406(10515): 2078-2088.
[45]Wang C, Zhao X, Zhang L, et al. OA01.06 a phase Ⅱ study of perioperative ivonescimab alone or combined with chemotherapy in resectable non-small cell lung cancer[J]. J Thorac Oncol, 2024, 19(S10): S10.
[46]Heymach J V, Harpole D, Mitsudomi T, et al. Perioperative durvalumab for resectable non-small-cell lung cancer[J]. N Engl J Med, 2023, 389(18): 1672-1684.
[47]Cascone T, Awad M M, Spicer J D, et al. Perioperative nivolumab in resectable lung cancer[J]. N Engl J Med, 2024, 390(19): 1756-1769.
[48]Duan H T, Shao C J, Luo Z L, et al. Perioperative sintilimab and neoadjuvant anlotinib plus chemotherapy for resectable non-small-cell lung cancer: a multicentre, open-label, single-arm, phase 2 trial (TD-NeoFOUR trial)[J]. Signal Transduct Target Ther, 2024, 9(1): 296.
[49]Wang M, Liu W R, Guo H B, et al. Perioperative penpulimab-based combination therapy in patients with resectable non-small cell lung cancer (ALTER-L043): an open-label, multicenter, randomized, phase Ⅱ trial[J]. Signal Transduct Target Ther, 2026, 11(1): 21.
 分享
本网站所有内容来源注明为“梅斯医学”或“MedSci原创”的文字、图片和音视频资料,版权均属于梅斯医学所有。非经授权,任何媒体、网站或个人不得转载,授权转载时须注明来源为“梅斯医学”。其它来源的文章系转载文章,或“梅斯号”自媒体发布的文章,仅系出于传递更多信息之目的,本站仅负责审核内容合规,其内容不代表本站立场,本站不负责内容的准确性和版权。如果存在侵权、或不希望被转载的媒体或个人可与我们联系,我们将立即进行删除处理。
在此留言







#非小细胞肺癌# #抗血管生成#
50 举报
抗血管生成的确是现有的发展方向!
29 举报